免疫耐受与免疫调节
免疫防御艰险😨强度如何调节🤔过强空耗机体😔不如效仿负反馈🤓免疫大将只剩几位😭谁敢当耐受与调节先锋🤔
免疫耐受
具有正常免疫功能,对一个抗原无动于衷,这对吗?这对吗?
还真有可能是对的!
免疫耐受 就是这么一个状态——具有正常免疫功能的免疫系统对特定抗原不产生免疫应答,它是一个 主动建立并维持 的特异性过程:
- 天然耐受/自身耐受
- 获得性耐受
免疫耐受最初被 Ray Owen 于 1945 年在异卵双生小牛中观察到,两只牛通过胎盘交换血细胞,成年后两者血细胞仍能共存,且相互移植皮肤也不会引起排斥。
之后,Billingham 和 Medawar 和做了一个经典实验证明了免疫耐受的存在,且表明其是可以被后天建立的过程:
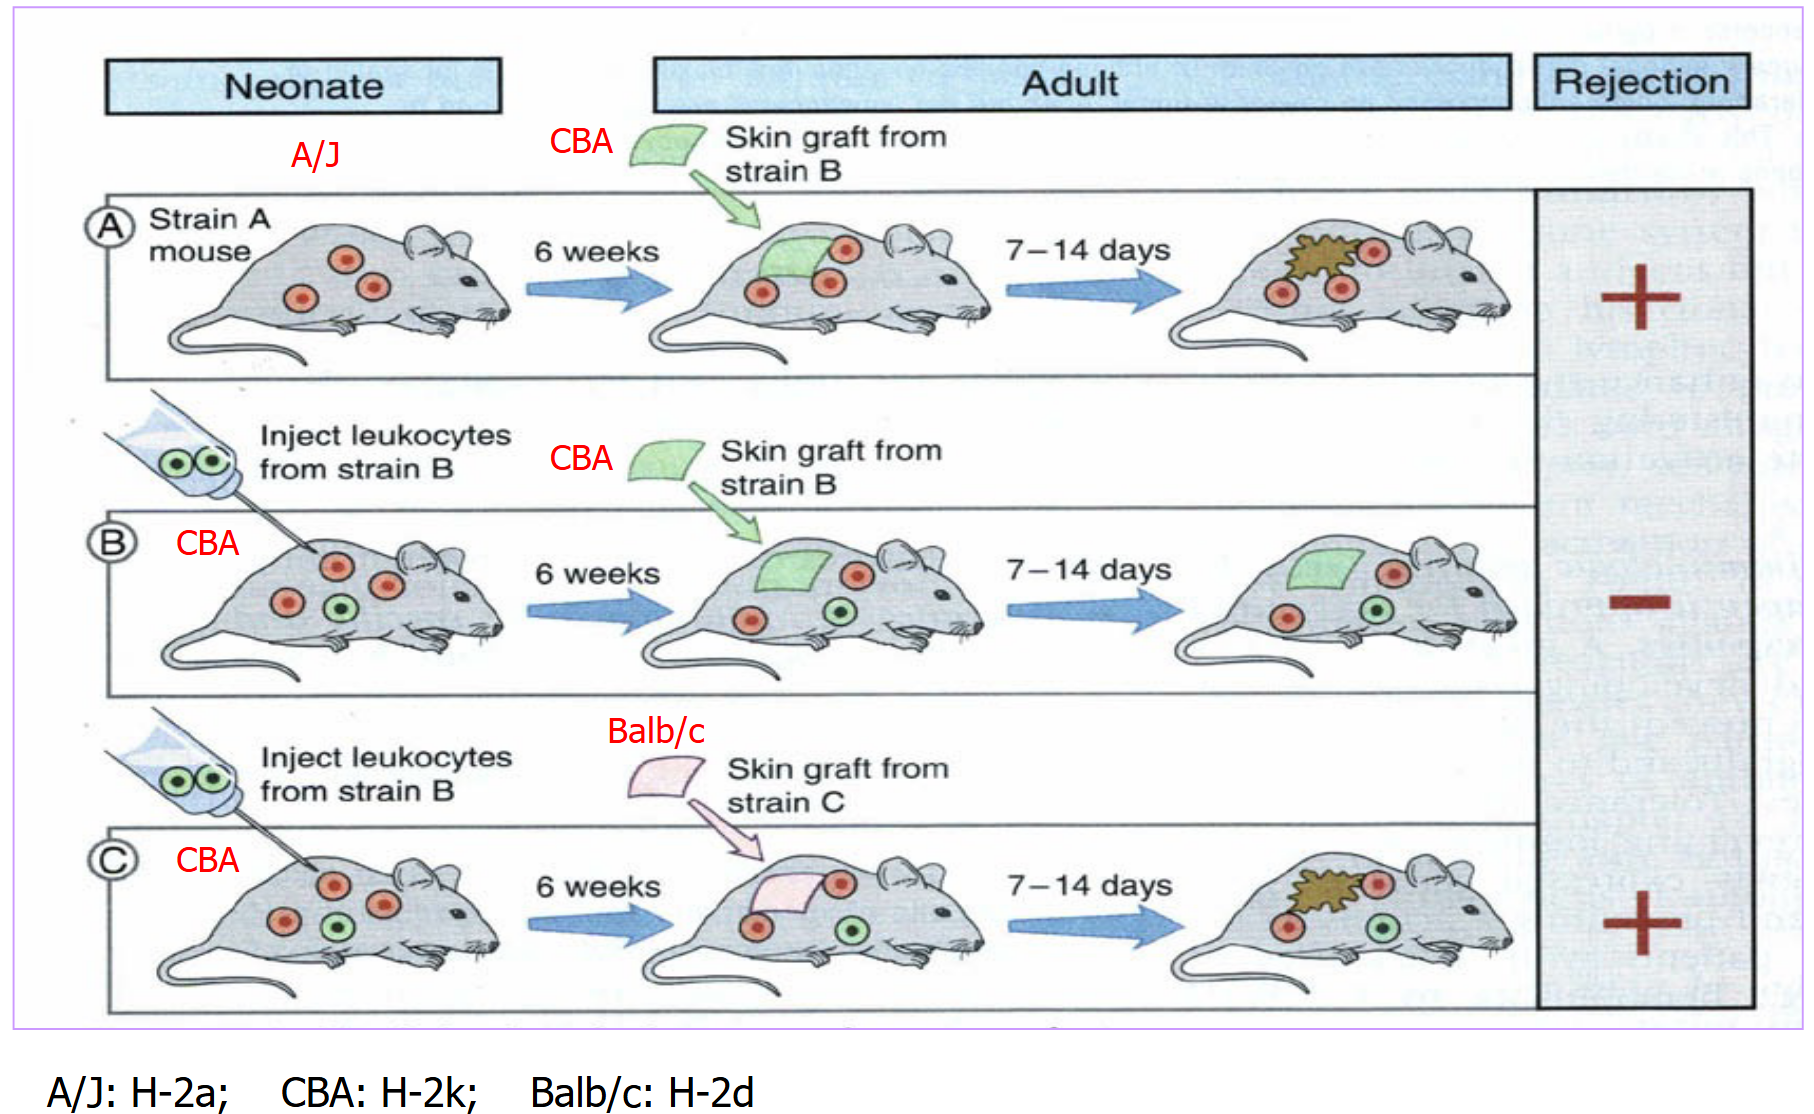
那问题来了,机体内免疫耐受的过程是在哪里发生的?过程是什么?
中枢耐受
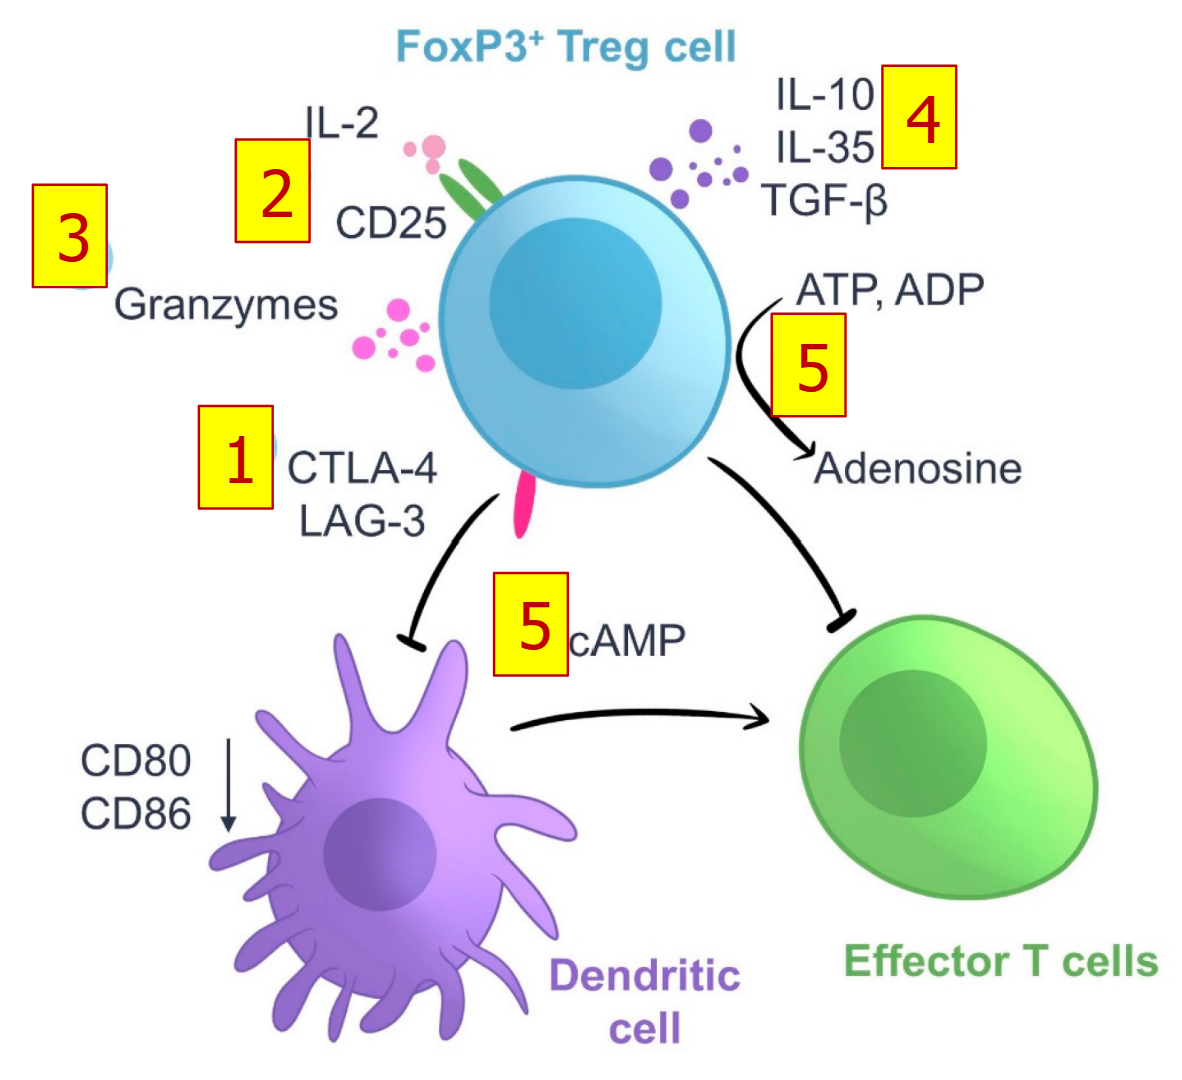
中枢耐受是重要的自身免疫机制,在淋巴细胞发育章节中,我们已经提到了胸腺中 T 细胞,骨髓中 B 细胞都会有相应的筛选过程,以避免自身免疫性的 T/B 细胞流入外周免疫系统。而这个过程就叫做 中枢耐受。
很不幸,在这里我们还是要以 T 细胞为主,私密马赛!ビー せんぱい!
好吧我承认我在这里玩了一个很烂的谐音梗……
細胞 -> さいぼう (saibou)
先輩 -> せんぱい (senpai)
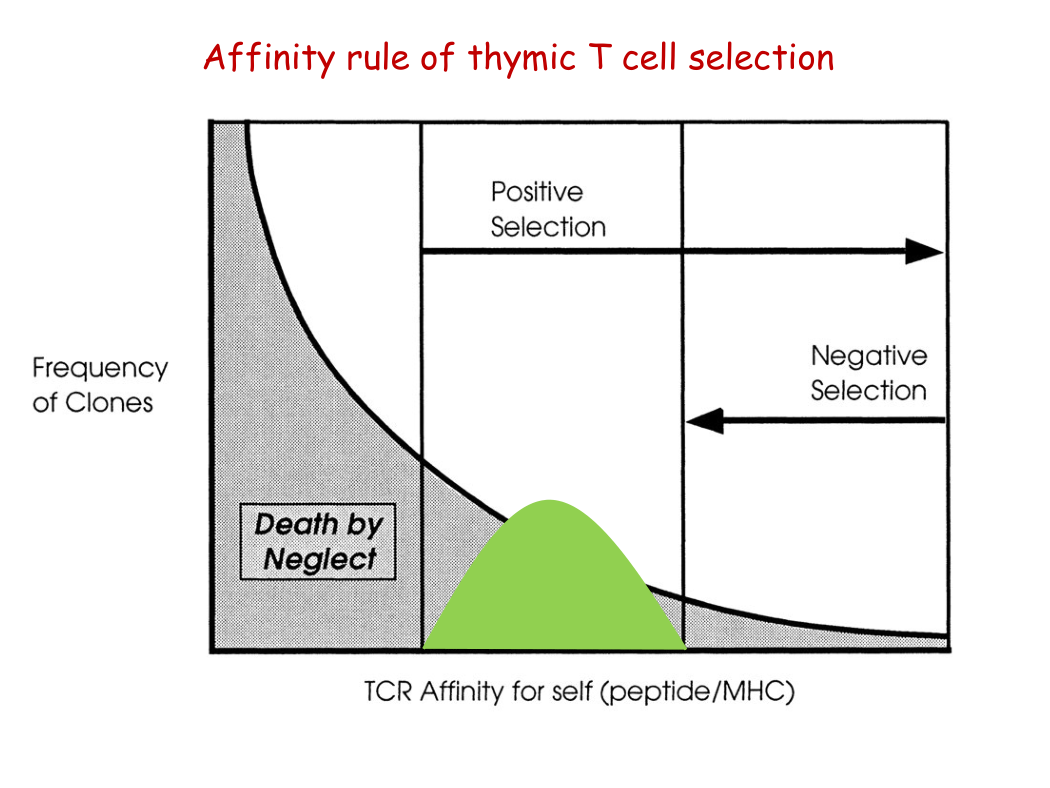
对于 T 细胞来说,其中枢免疫耐受的形成涉及两个过程:
- 阳性选择:只有能够有效识别胸腺上皮细胞所表达的 MHC I/II 分子的 T 细胞才能获得足够的存活信号
- 这个过程还包括对 MHC I/II 偏好的分选,决定了 T 细胞向 CD4/8 两种谱系分化命运。
- 阴性选择:只有不与巨噬细胞、树突细胞等呈递的 自身抗原肽-MHC 复合物产生强烈识别与结合的 T 细胞才能存活。从而去除对自身抗原免疫应答的 T 细胞。
Harald von Boehmer 于 1988 年将已知能识别特定雄性特异抗原肽 + 特异 MHC 分子的 T 细胞输入两种雌鼠(MHC是否匹配)和一种雄鼠(MHC匹配)体内,证实了双向选择的存在。
已有研究表明,阴性选择通过 Bcl 凋亡途径介导自身免疫应答的 T 细胞的清除。
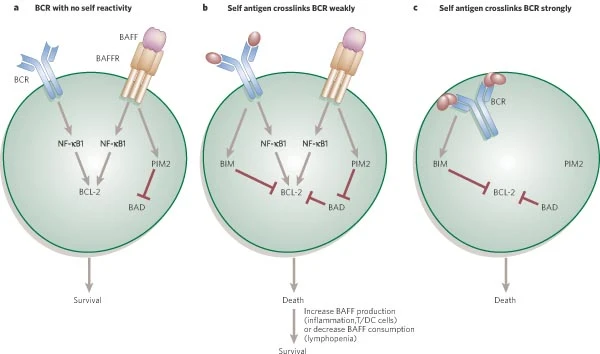
这里有个老生常谈的问题,也在之前淋巴细胞发育的章节中提到了,胸腺怎么知道什么是自身抗原?
谜底写在谜面上!就在你的基因组里!
mTEC,即胸腺髓质上皮细胞,在 AIRE (Autoimmune regulator, 自身免疫调节因子)的推动下,可以从自身基因组里转录出许多组织限制性抗原。mTEC 可以通过 MHC I/II 自行呈递给 T 细胞,也可以交由 DC 这位专业 APC 转交递呈给 T 细胞。
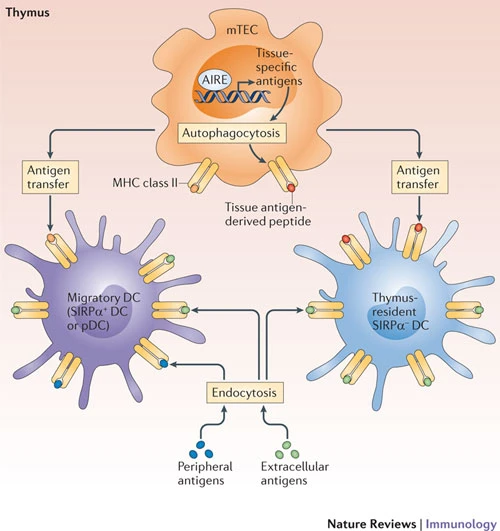
人类 AIRE 缺陷可能会导致 APECED 或 APS-1 的发病。
外周耐受
当然,中枢不能包办一切,在一线作战的时候,总有意外情况发生,免疫系统也知道这个道理,所以除了中枢耐受,免疫系统还允许 外周耐受 的发生,以防止一些意外情况出现,或者适当做出免疫过程控制:
- 并非所有自身抗原都能在骨髓、胸腺中得到展示
- 阴性选择难免有漏网之鱼
而外周免疫耐受如何解决这些问题?有三种主要途径:
- 无能 Anergy:无能状态的产生来自免疫系统的小巧思,T 细胞的正常激活需要共刺激信号,但是如果只给予 TCR 识别激活,却不给共刺激信号呢?T 细胞就会进入 存活但是功能性不应答 的状态!
- 大多数组织细胞和 静息状态 的 APC 都缺乏共刺激分子,这意味着如果在和平时期有一个 T 细胞忽然跳出来说 “有敌人!!!”,大家大多会把它当个自身免疫反应的疯子来看。当它试图通过 TCR 识别刺激自己活化时候,会因为缺乏共刺激信号而无能。
- 删除 deletion/AICD:如果一个 T 细胞在外周免疫系统过度活化,或者被自身抗原反复刺激时候,AICD,即活化诱导的细胞死亡,就会启用 T 细胞凋亡,清除上窜下跳的自身免疫反应细胞。
- AICD 的核心通路为 Fas-FasL,反复被激活的 T 细胞会上调表达 Fas(CD95) 和 FasL,FasL 与 Fas 结合后,会刺激后者三聚化,胞内死亡结构域招募 FADD,进而招募和活化 Caspase-8,引发凋亡过程。
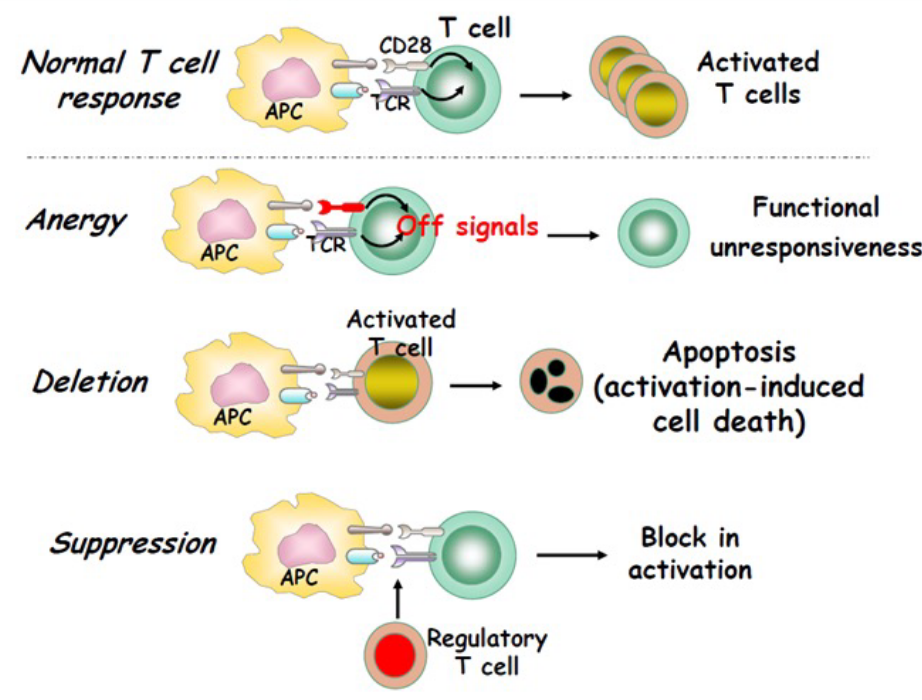
Treg:让好汉查好汉!
外周免疫耐受中诺奖级的发现,Treg
坂口志文于 1995 年研究表明,去除 CD25⁺ 细胞的模型更容易诱发自身免疫病,而回补 CD4⁺CD25⁺ 细胞可以抑制疾病的发生。
这个研究第一次揭示了一种天然存在于免疫系统中的,参与抑制自身免疫疾病发生的细胞(或者说抑制免疫作用的细胞)。
之后又发现了 FOXP3 转录因子,其是维持典型 Treg 发育和功能的关键转录因子,其的上调可以显著提升 Treg 的水平。
总的来说,Treg 是一群 CD4⁺、CD25⁺(IL-2Rα),以 FOXP3 转录因子为独特代表的,表达 CTLA-4 参与抑制作用的 T 淋巴细胞。其上还会表达 GITR (糖皮质激素诱导的肿瘤坏死因子受体)作为被抑制受体。
我从哪里来?
体内 Treg 主要有两个来源:
- 胸腺来源:称为 tTreg
- 胸腺中经过 TCR 刺激和 TGF-β 信号的 T 细胞在 IL-2/IL-15 的刺激下上调 FOXP3,成为 tTreg
- 外周诱导:体内外周自然诱导的为 pTreg,体外诱导的称为 iTreg
- pTreg 由 native CD4+ T cell 在 TGF-β 信号刺激下分化
团结一切可以团结的力量——tTreg
前面我们说过,在中枢耐受模型中,对自身抗原具有强烈免疫应答的淋巴细胞会被阴性选择清除。
但这里存在一个例外,如果一个 T 细胞对自身抗原存在轻微的免疫应答,而不止于太强,其也有可能被 “收编” 为调节性 T 细胞,参与外周耐受。
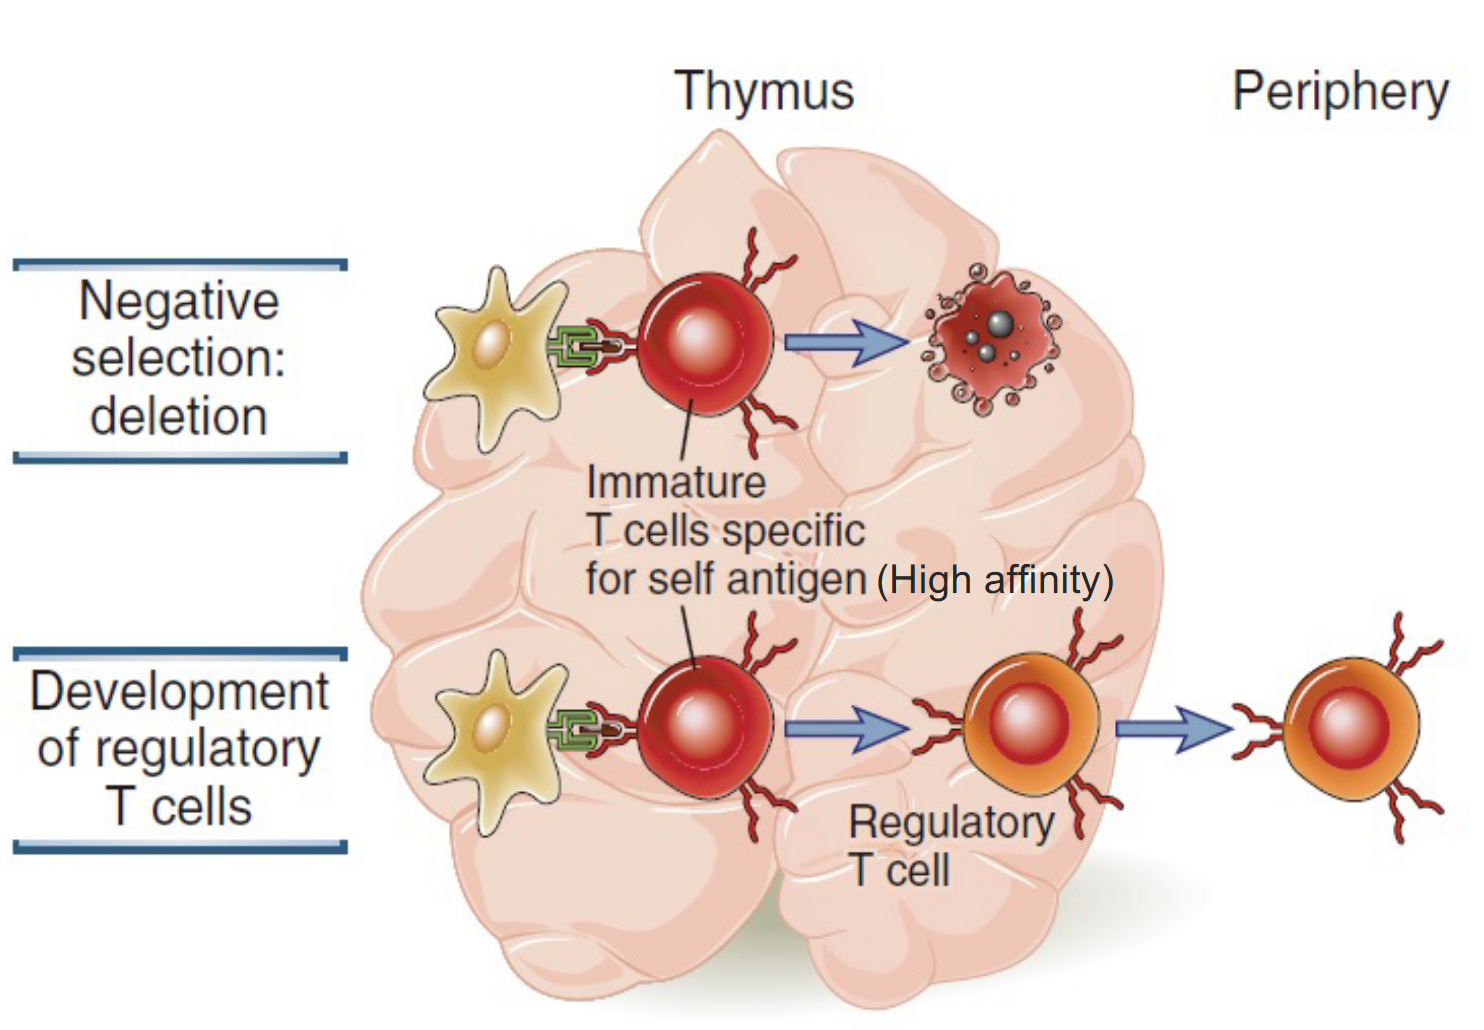
这使得我们必须修正我们的模型,为了严谨:
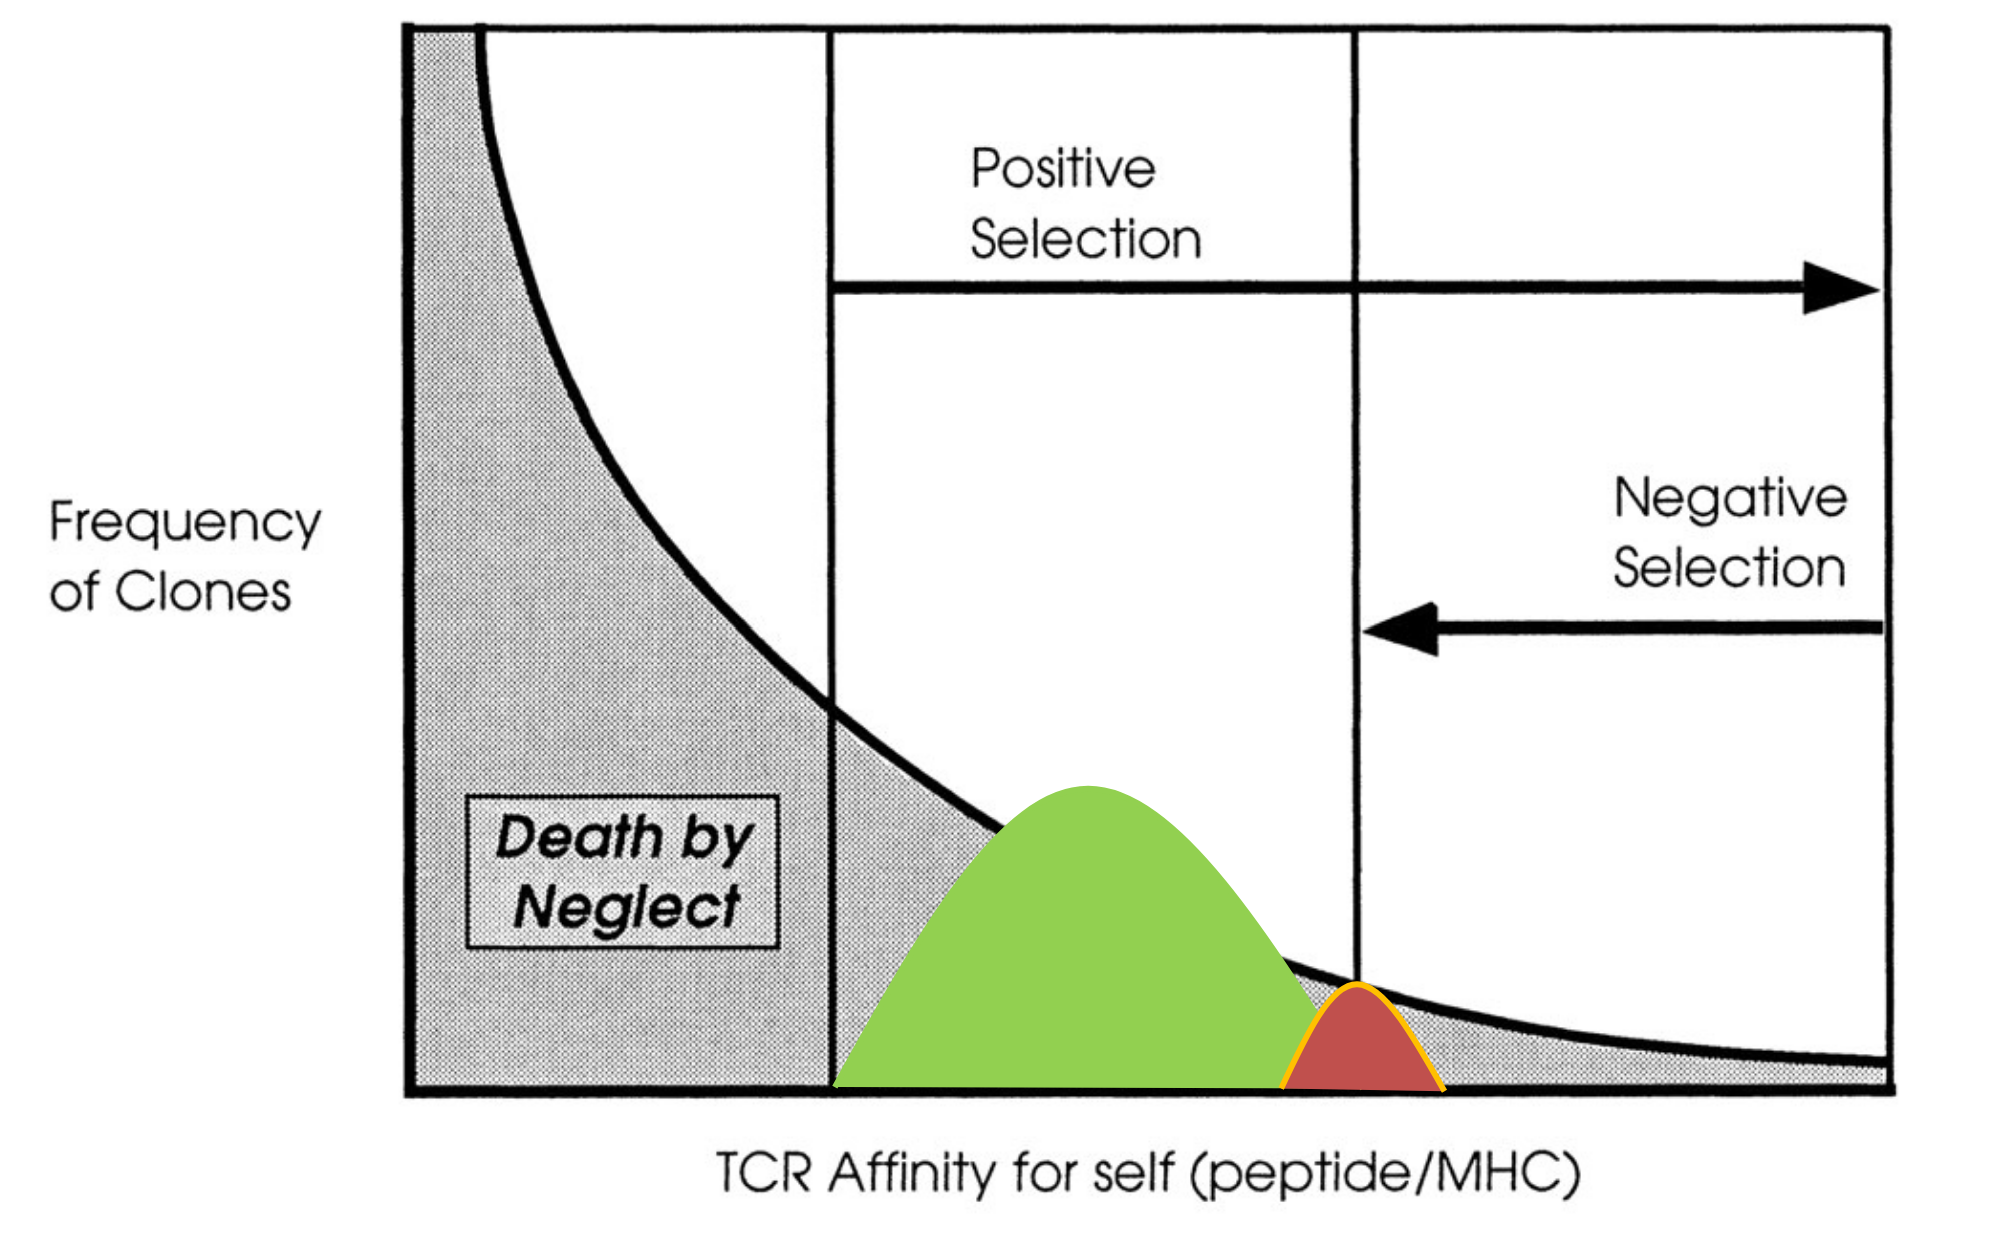
“收编” 的过程与克隆清除所不同,较弱的免疫反应给予了 TCR 激活信号,却不能获得足够的共刺激信号,乍一看不能激活其本身,实际上却是最幸运的事情——如果 T 细胞在中枢耐受得到了共刺激信号,那它离自刎归天也不远了。
只获得了 TCR 刺激信号的 T 细胞进入了一种类似于失能的状态,并在之后的 IL-2/IL-15 影响下分化为 tTreg。
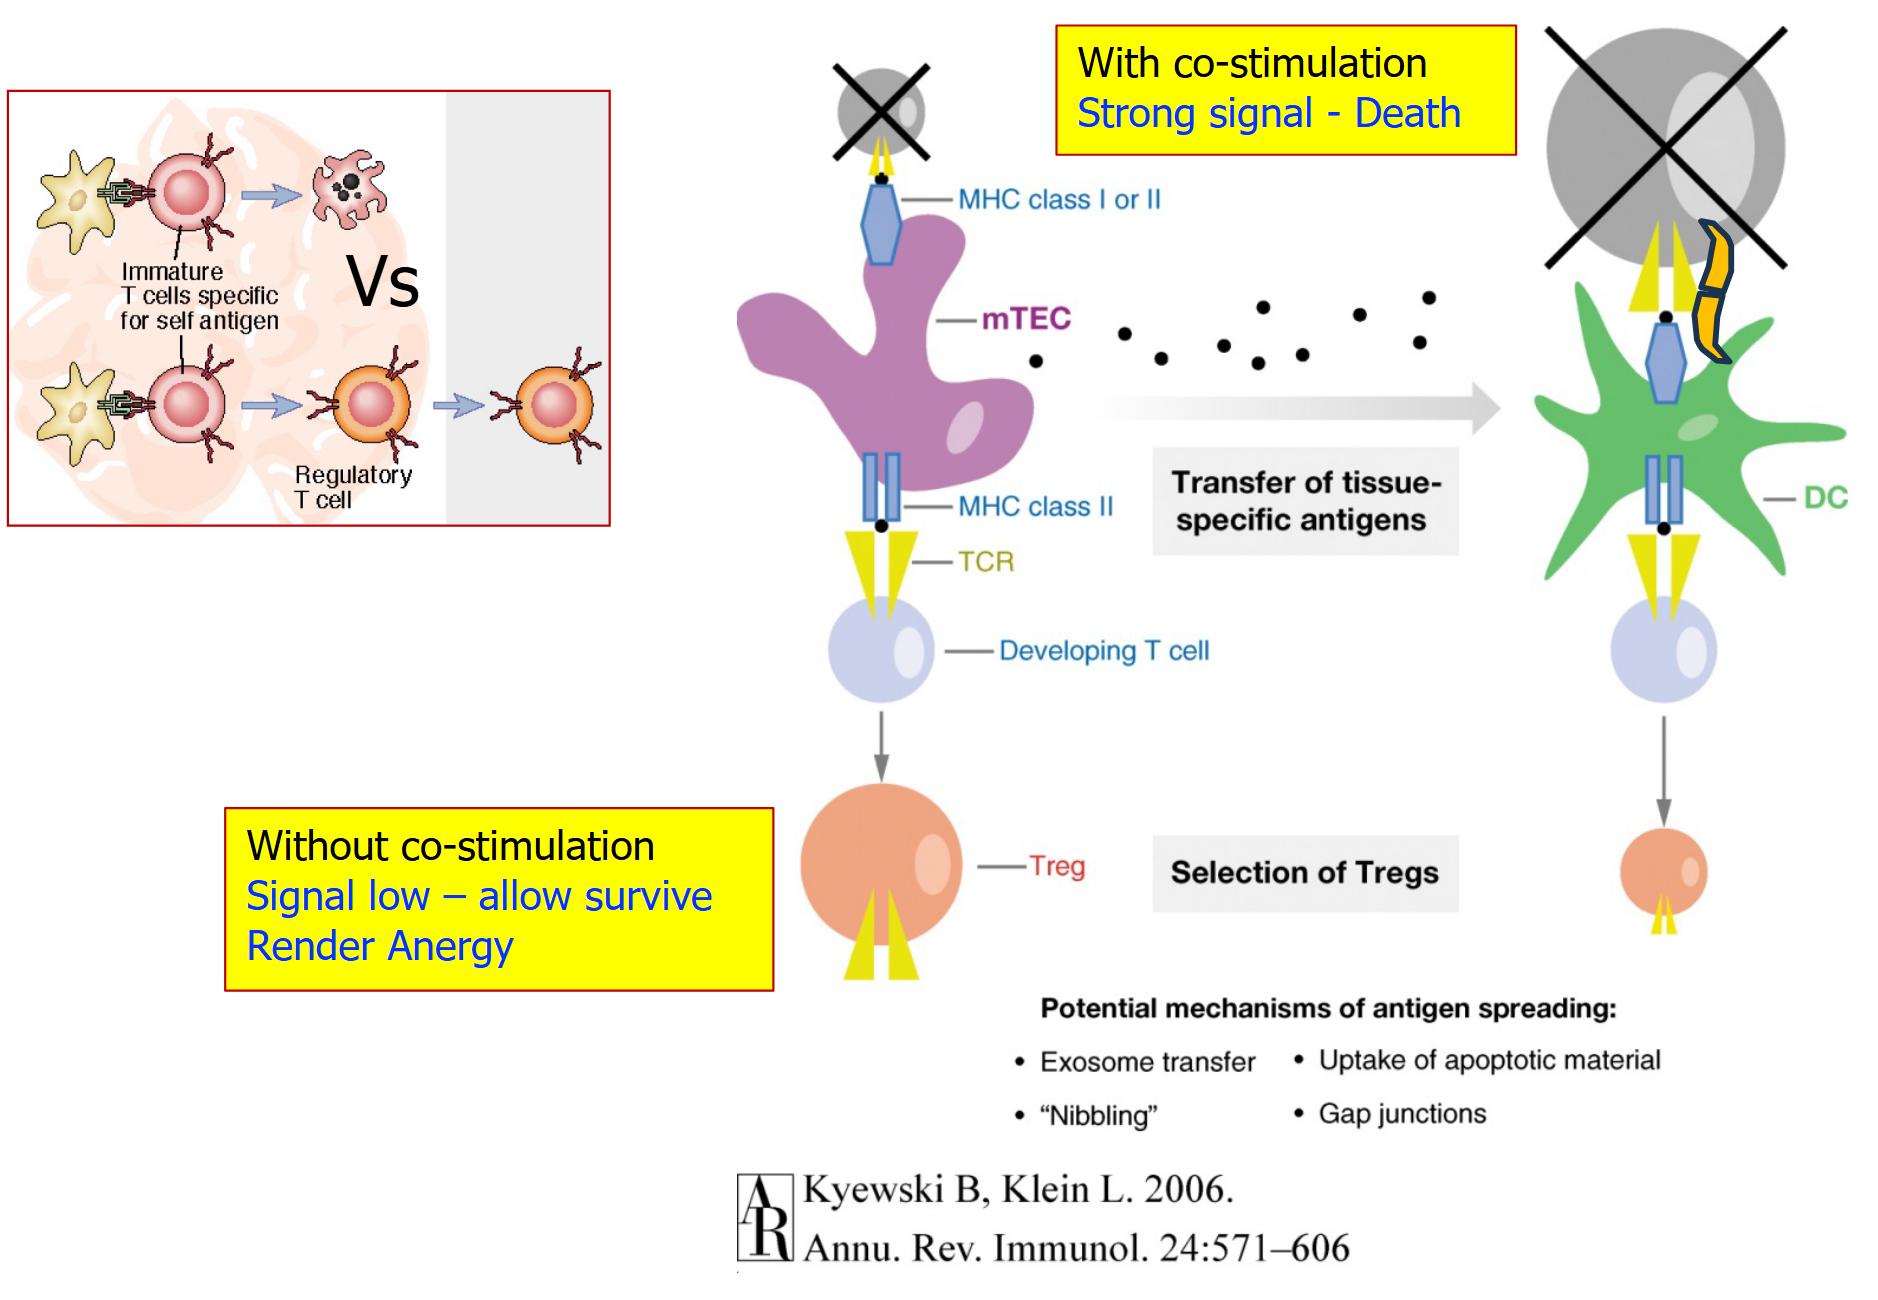
总结来说,Treg 整个发育图谱就可以简略表示在下图当中:
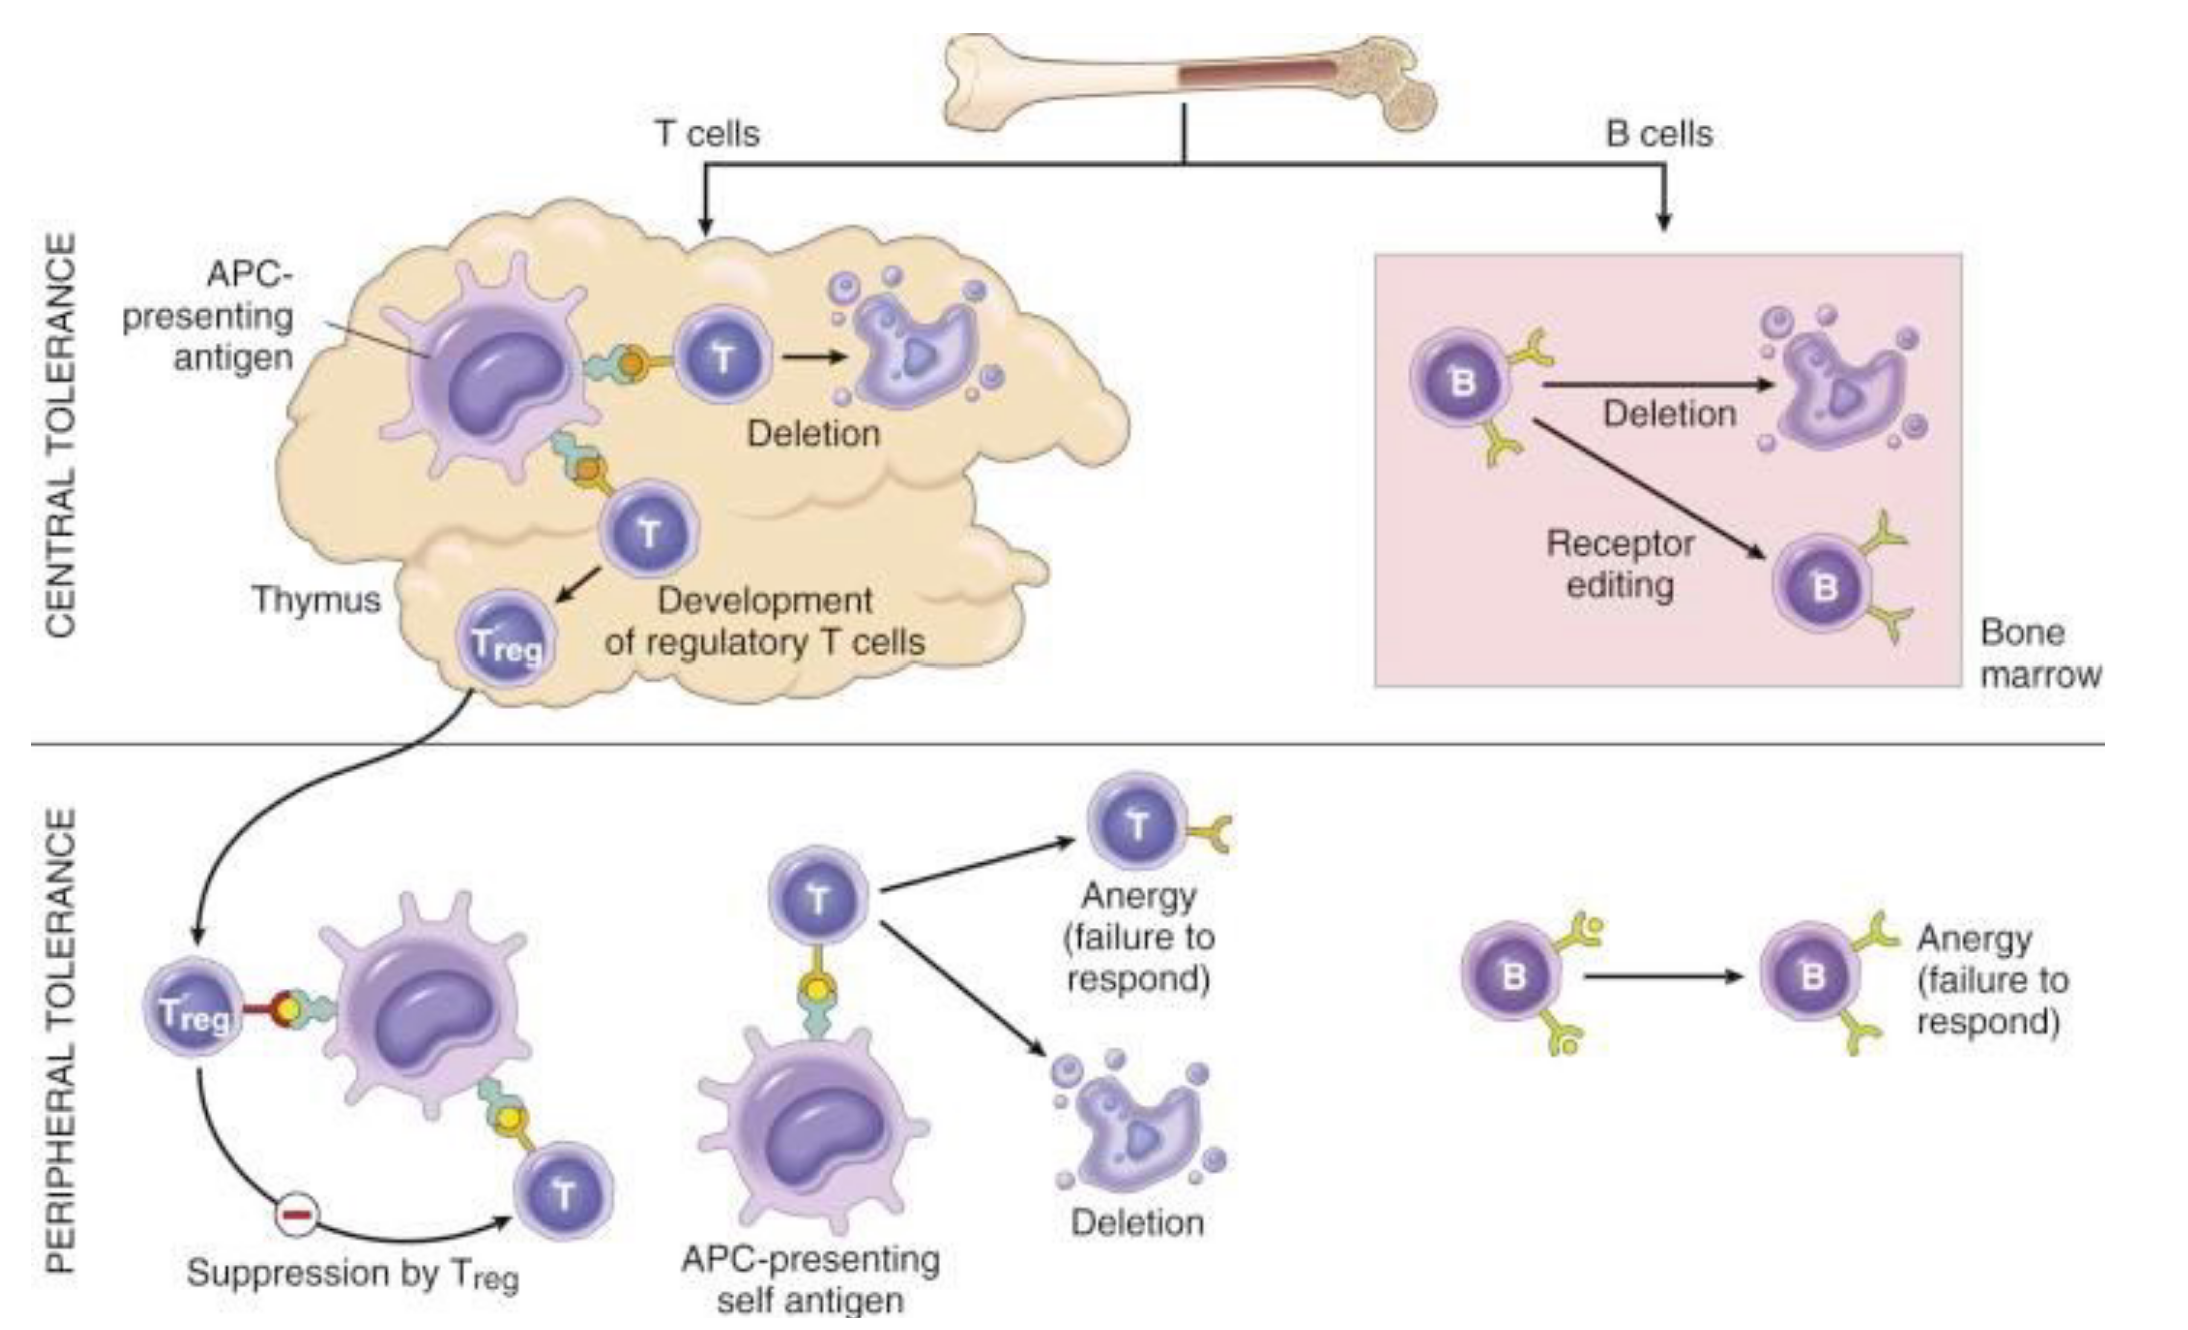
你们不要再打啦!
- 通过 CTLA-4 竞争结合 CD80/CD86,降低 APC 表面 B7 共刺激分子。
- 通过 CD25 (IL-2Rα) 与 CD122 (IL-2Rβ) 捕获 IL-2,限制其向其他 T 细胞传递生长信号。
- 通过颗粒酶等发生细胞毒作用,清除靶细胞。
- 表达 IL-10、TGF-β、IL-35 等细胞因子限制免疫反应。
- 通过腺苷、cAMP 改变局部环境,限制免疫过程。
免疫调节
相比起免疫耐受,是为了 预防 和 限制 免疫功能的错误发挥,免疫调节所涉及的内容和过程更加广泛,其需要考虑免疫何时启动,强度多大,持续多久,如何终止的全流程问题。
简而言之,是一个如何 “一碗水端平” 的技术活。
活化信号与抑制信号的平衡
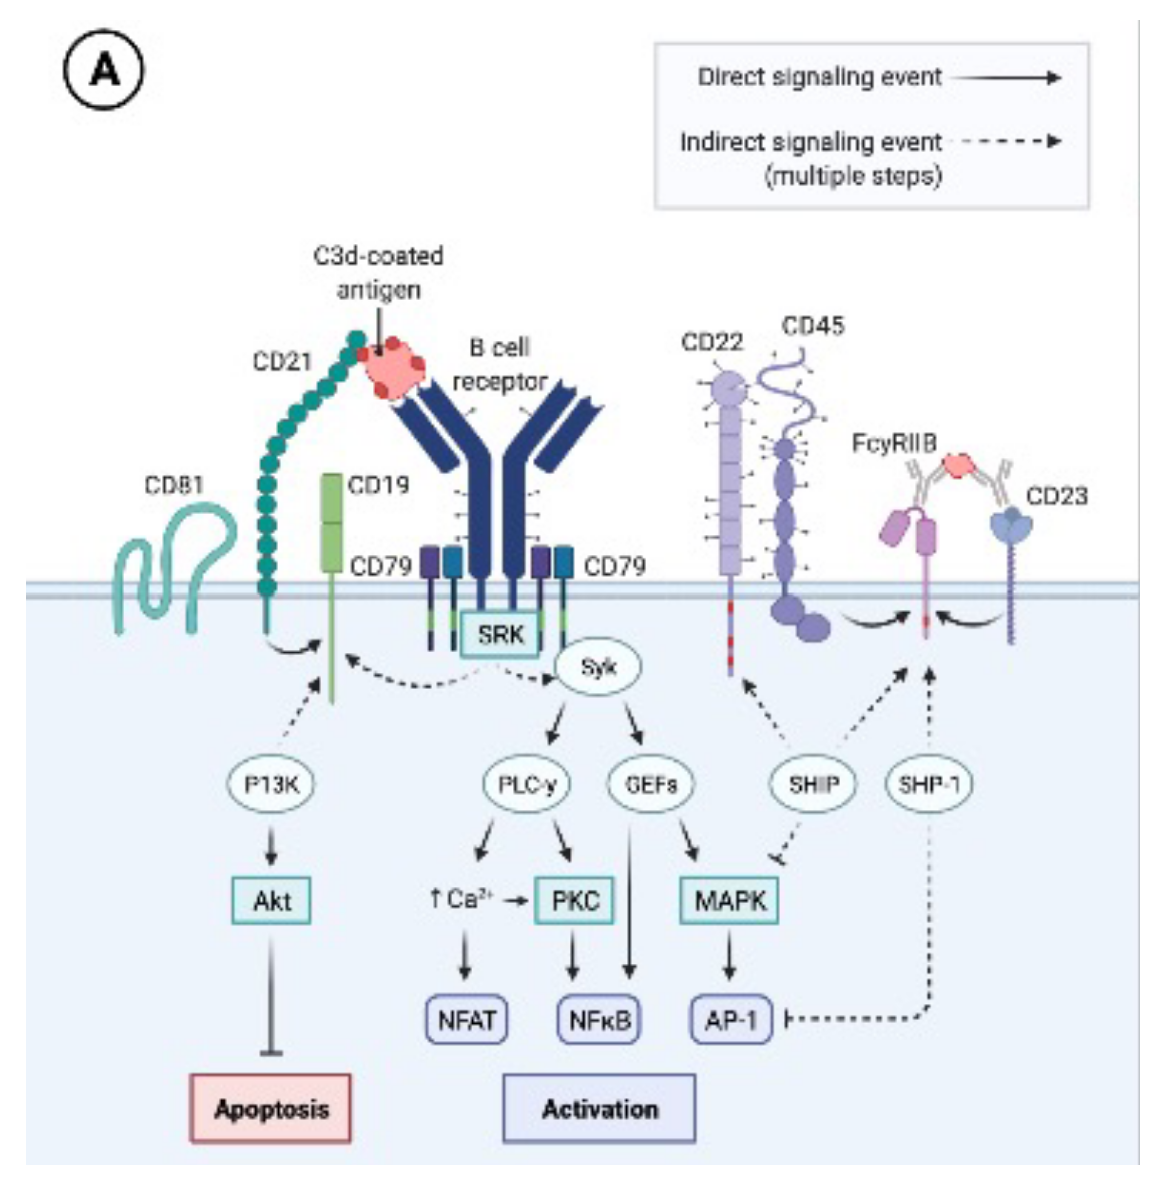
在 B 细胞介导的免疫反应章节的最后,我们提过一嘴,B 细胞的负向调控中,ITIM 和 ITAM 的平衡参与了体液免疫强度的调节过程。
- ITAM:免疫受体酪氨酸活化基序,通过蛋白激酶、接头蛋白促进活化信号
- ITIM:免疫受体酪氨酸抑制基序,通过 SHP、SHIP 等磷酸酶抑制活化信号传递
虽然只是在 B 细胞提过一嘴,但是 B/T 细胞都遵循这个调节过程。
对于 T 细胞来说:
- 活化:TCR - 抗原肽-MHC 复合物,CD28-B7
- 抑制:CTLA-4 - B7,PD-1 - PD-L1
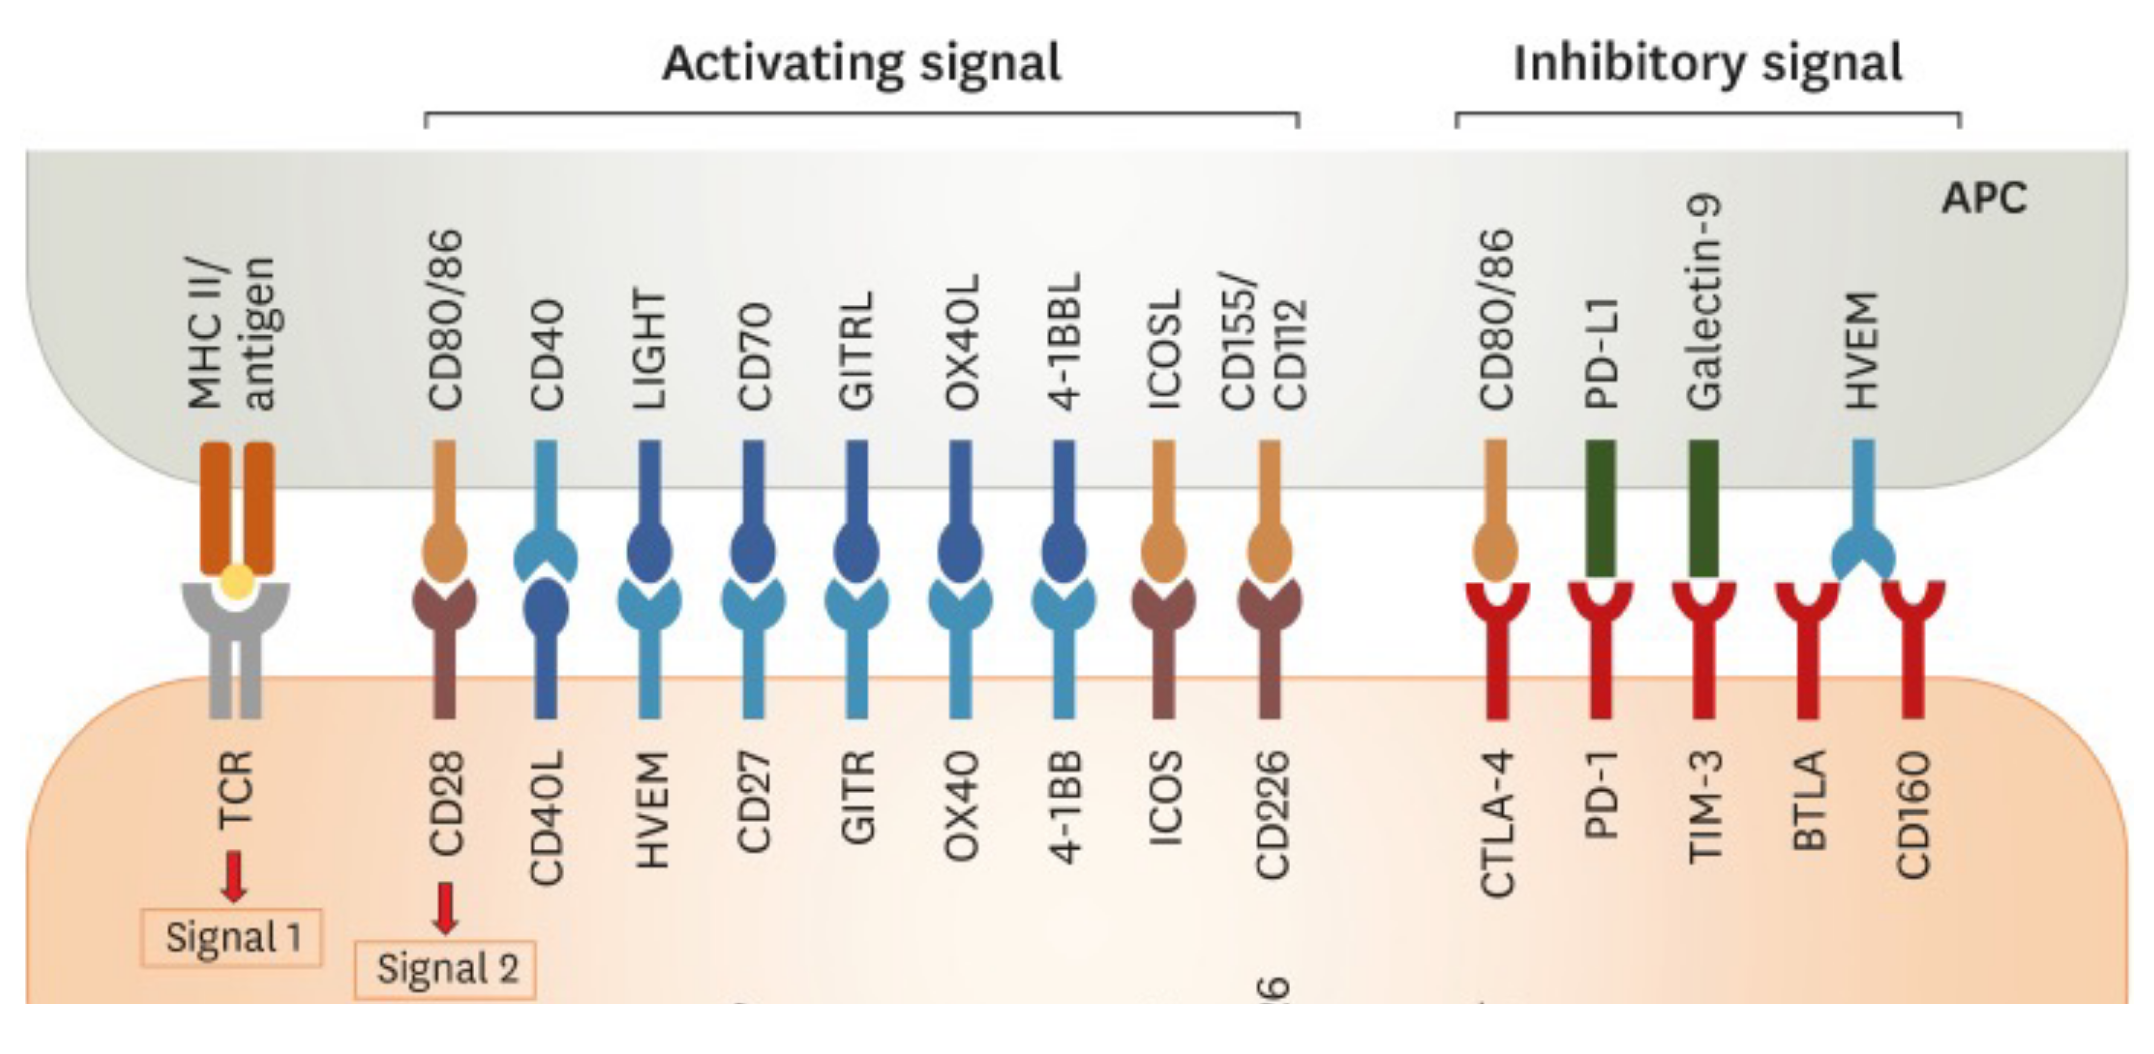
对于 B 细胞来说:
- 活化:CD19/CD21
- 抑制:CD22, FcγRIIB
CTLA-4
早在 T 细胞介导免疫应答章节中,我们就埋下了伏笔,CTLA-4 作为一种与 B7 共刺激分子结合的抑制性受体,会与 CD28 竞争结合机会。
静息状态下,CD28 单独表达于细胞膜上,被 APC 激活后,CTLA-4 表达上调,凭借更高的亲和力与 CD28 竞争结合 B7 的机会,从而限制 T 细胞得到的共刺激信号强度。
这种 负反馈调节 的方式有效控制了 T 细胞在激活中受到的刺激强度,避免过强的免疫反应发生。
PD-1
PD-1 是一种可以与 PD-L1/2 配体结合的膜上受体,当其与结合,会抑制 T 细胞的活化和效应功能。
相较于 CTLA-4 早早在淋巴组织中参与到对 T 细胞活化的负向调控,PD-1 似乎可以说是 “大器晚成”,其主要在外周免疫中发挥负向调控作用,外周组织与肿瘤组织所表达的 PD-L1 可以抑制 T 细胞(特别是 CTL)发挥其免疫功能。
免疫检查点
CTLA-4 与 PD-1 因为都具有给免疫反应 “踩刹车” 的生理功能,也被称为 免疫检查点,在抗肿瘤免疫等环节受到大量的关注。
NK cell:老大,刚来,我们打谁!?
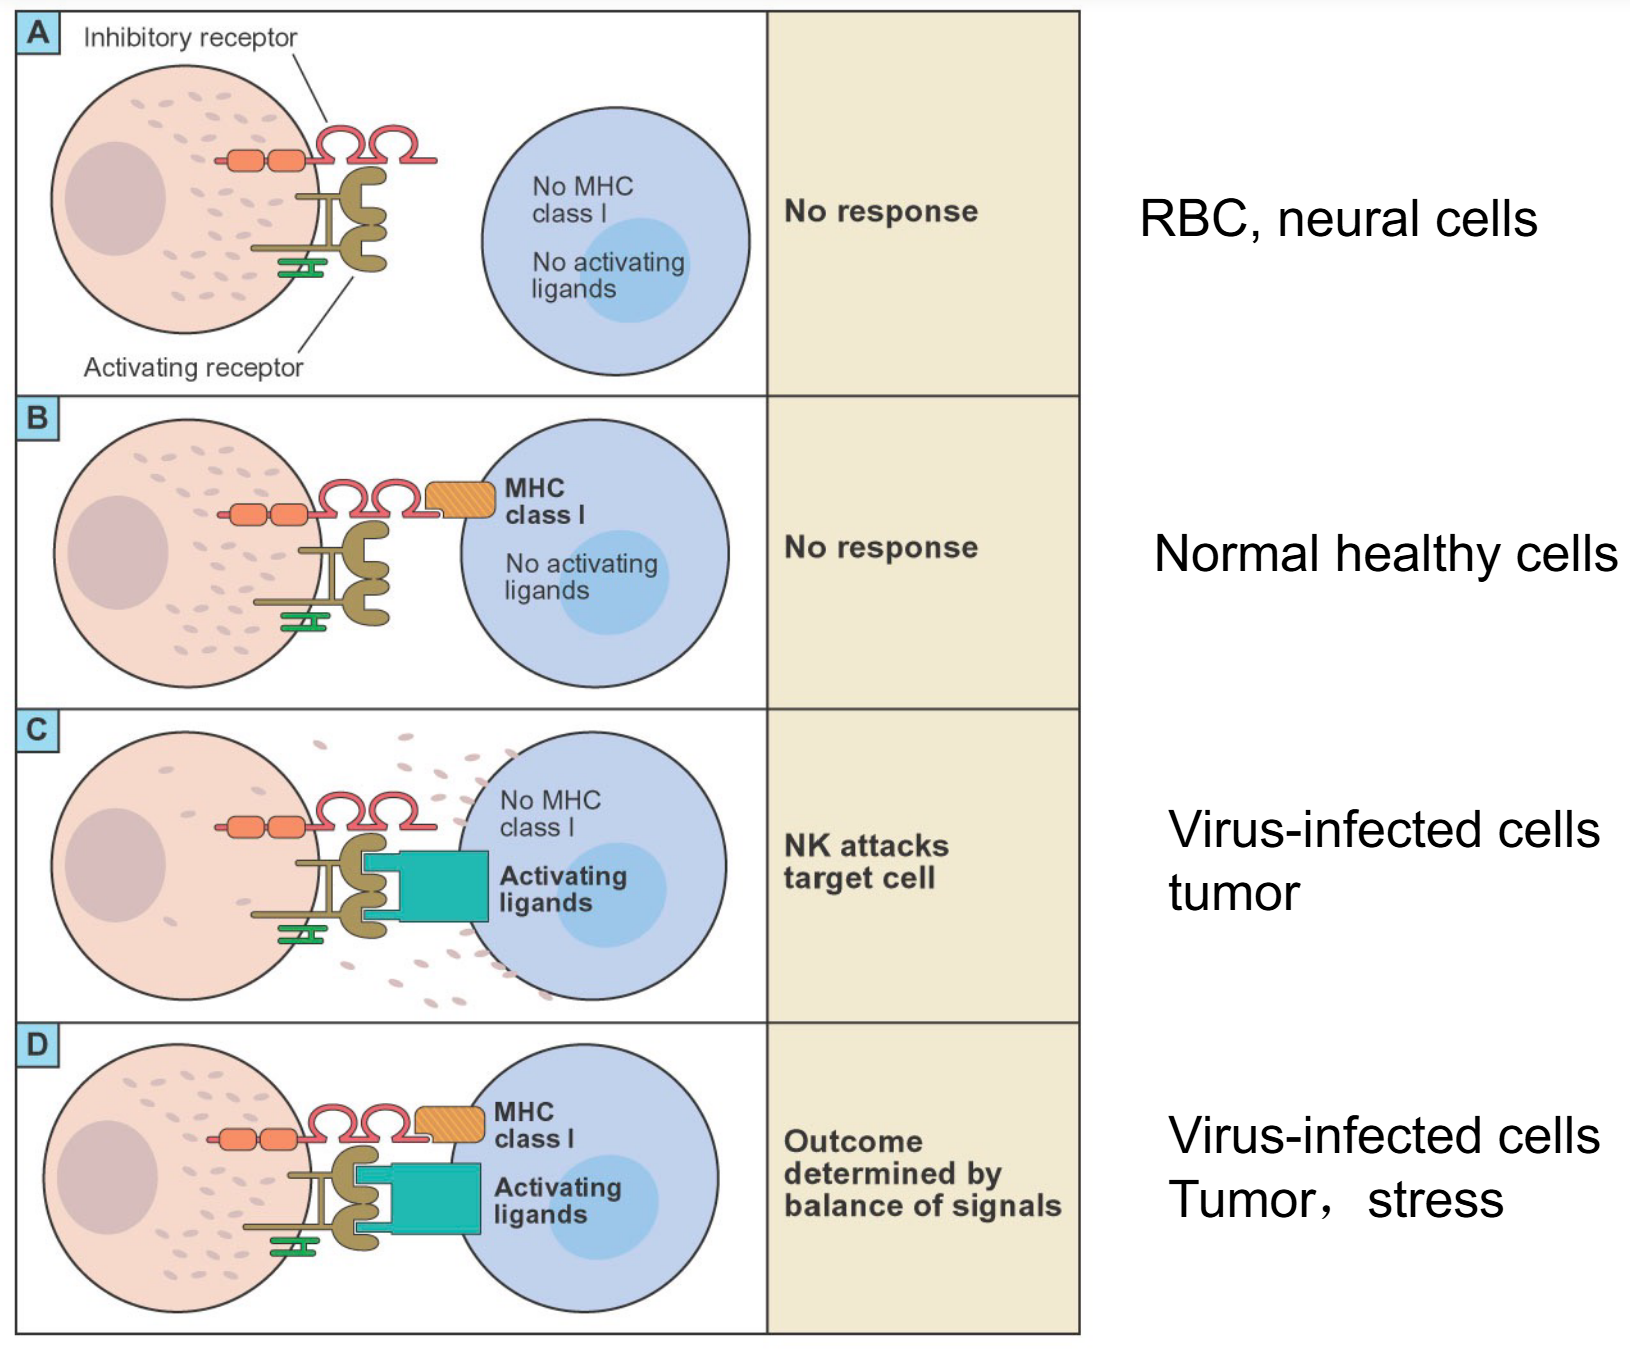
NK 细胞是固有免疫里的暴脾气,人称固有小CTL,其膜上具有两种受体:
- 活化性受体:识别靶细胞相关配体,推动细胞杀伤
- 抑制性受体:识别自身 MHC I 等分子,限制杀伤
其中,如果目标细胞 MHC I 分子表达下调,NK 细胞失去抑制,在其他活化信号作用下,往往可能激怒其大开杀戒。这是一种对抗肿瘤免疫逃逸的策略。