固有免疫
固有免疫,是一种无特异性与记忆性,反应迅速但作用相对局限的一种机体防御机制。
与之相对的是适应性免疫。
固有免疫组成
固有免疫的组成包括了物理结构(屏障)、参与人员(免疫细胞)和进攻武器(免疫分子)
- 组织屏障
- 皮肤黏膜
- 体内屏障
- 固有免疫细胞
- 经典固有免疫细胞
- 固有淋巴样细胞
- 固有淋巴细胞
- 固有免疫分子
- 补体 Complement
- 细胞因子 Cytokines
- 其他抗菌物质
细胞因子
考点
记住主要的细胞因子分类和基本功能。
定义与分类
细胞因子是体内各种细胞在刺激物作用下释放的小分子蛋白质,通过与特定受体结合诱导免疫应答。
常见有:
- IL-1 家族
- 血细胞生成素超家族
- 干扰素
- TNF 家族
- 趋化因子
IL-1 家族
IL,即 interleukin,中文 白细胞介素。这个家族内容之复杂,成员之繁多,以至于规范化命名使用以数字来命名。之所以名为白细胞介素,源于其由白细胞产生又在白细胞间发挥调节作用的生理地位和作用。
- 代表成员:IL-1α、IL-1β、IL-1RA、IL-18、IL-33、IL-36、IL-37、IL-38
- 受体/信号特点:IL-1R/TLR 超家族,胞内 TIR 结构域,MyD88 → NF-κB/MAPK
- 主要功能:促炎、发热、固有免疫、部分抗炎
在结构上,多为 无信号肽 的胞质蛋白(部分依赖于炎症小体加工);IL-1β、IL-18 以无活性前体形式存在,需 caspase-1 切割。
“无信号肽” 的跨膜秘诀
对于具有信号肽序列的蛋白,如IL-2、IL-6、IL-10 等,其可以通过 内质网-高尔基体-胞外 的经典分泌蛋白途径分泌。
但是对于没有信号肽的白细胞介素该怎么办?
对于 IL-1β 来说,其可以通过 GSDMD 孔道实现快速分泌:
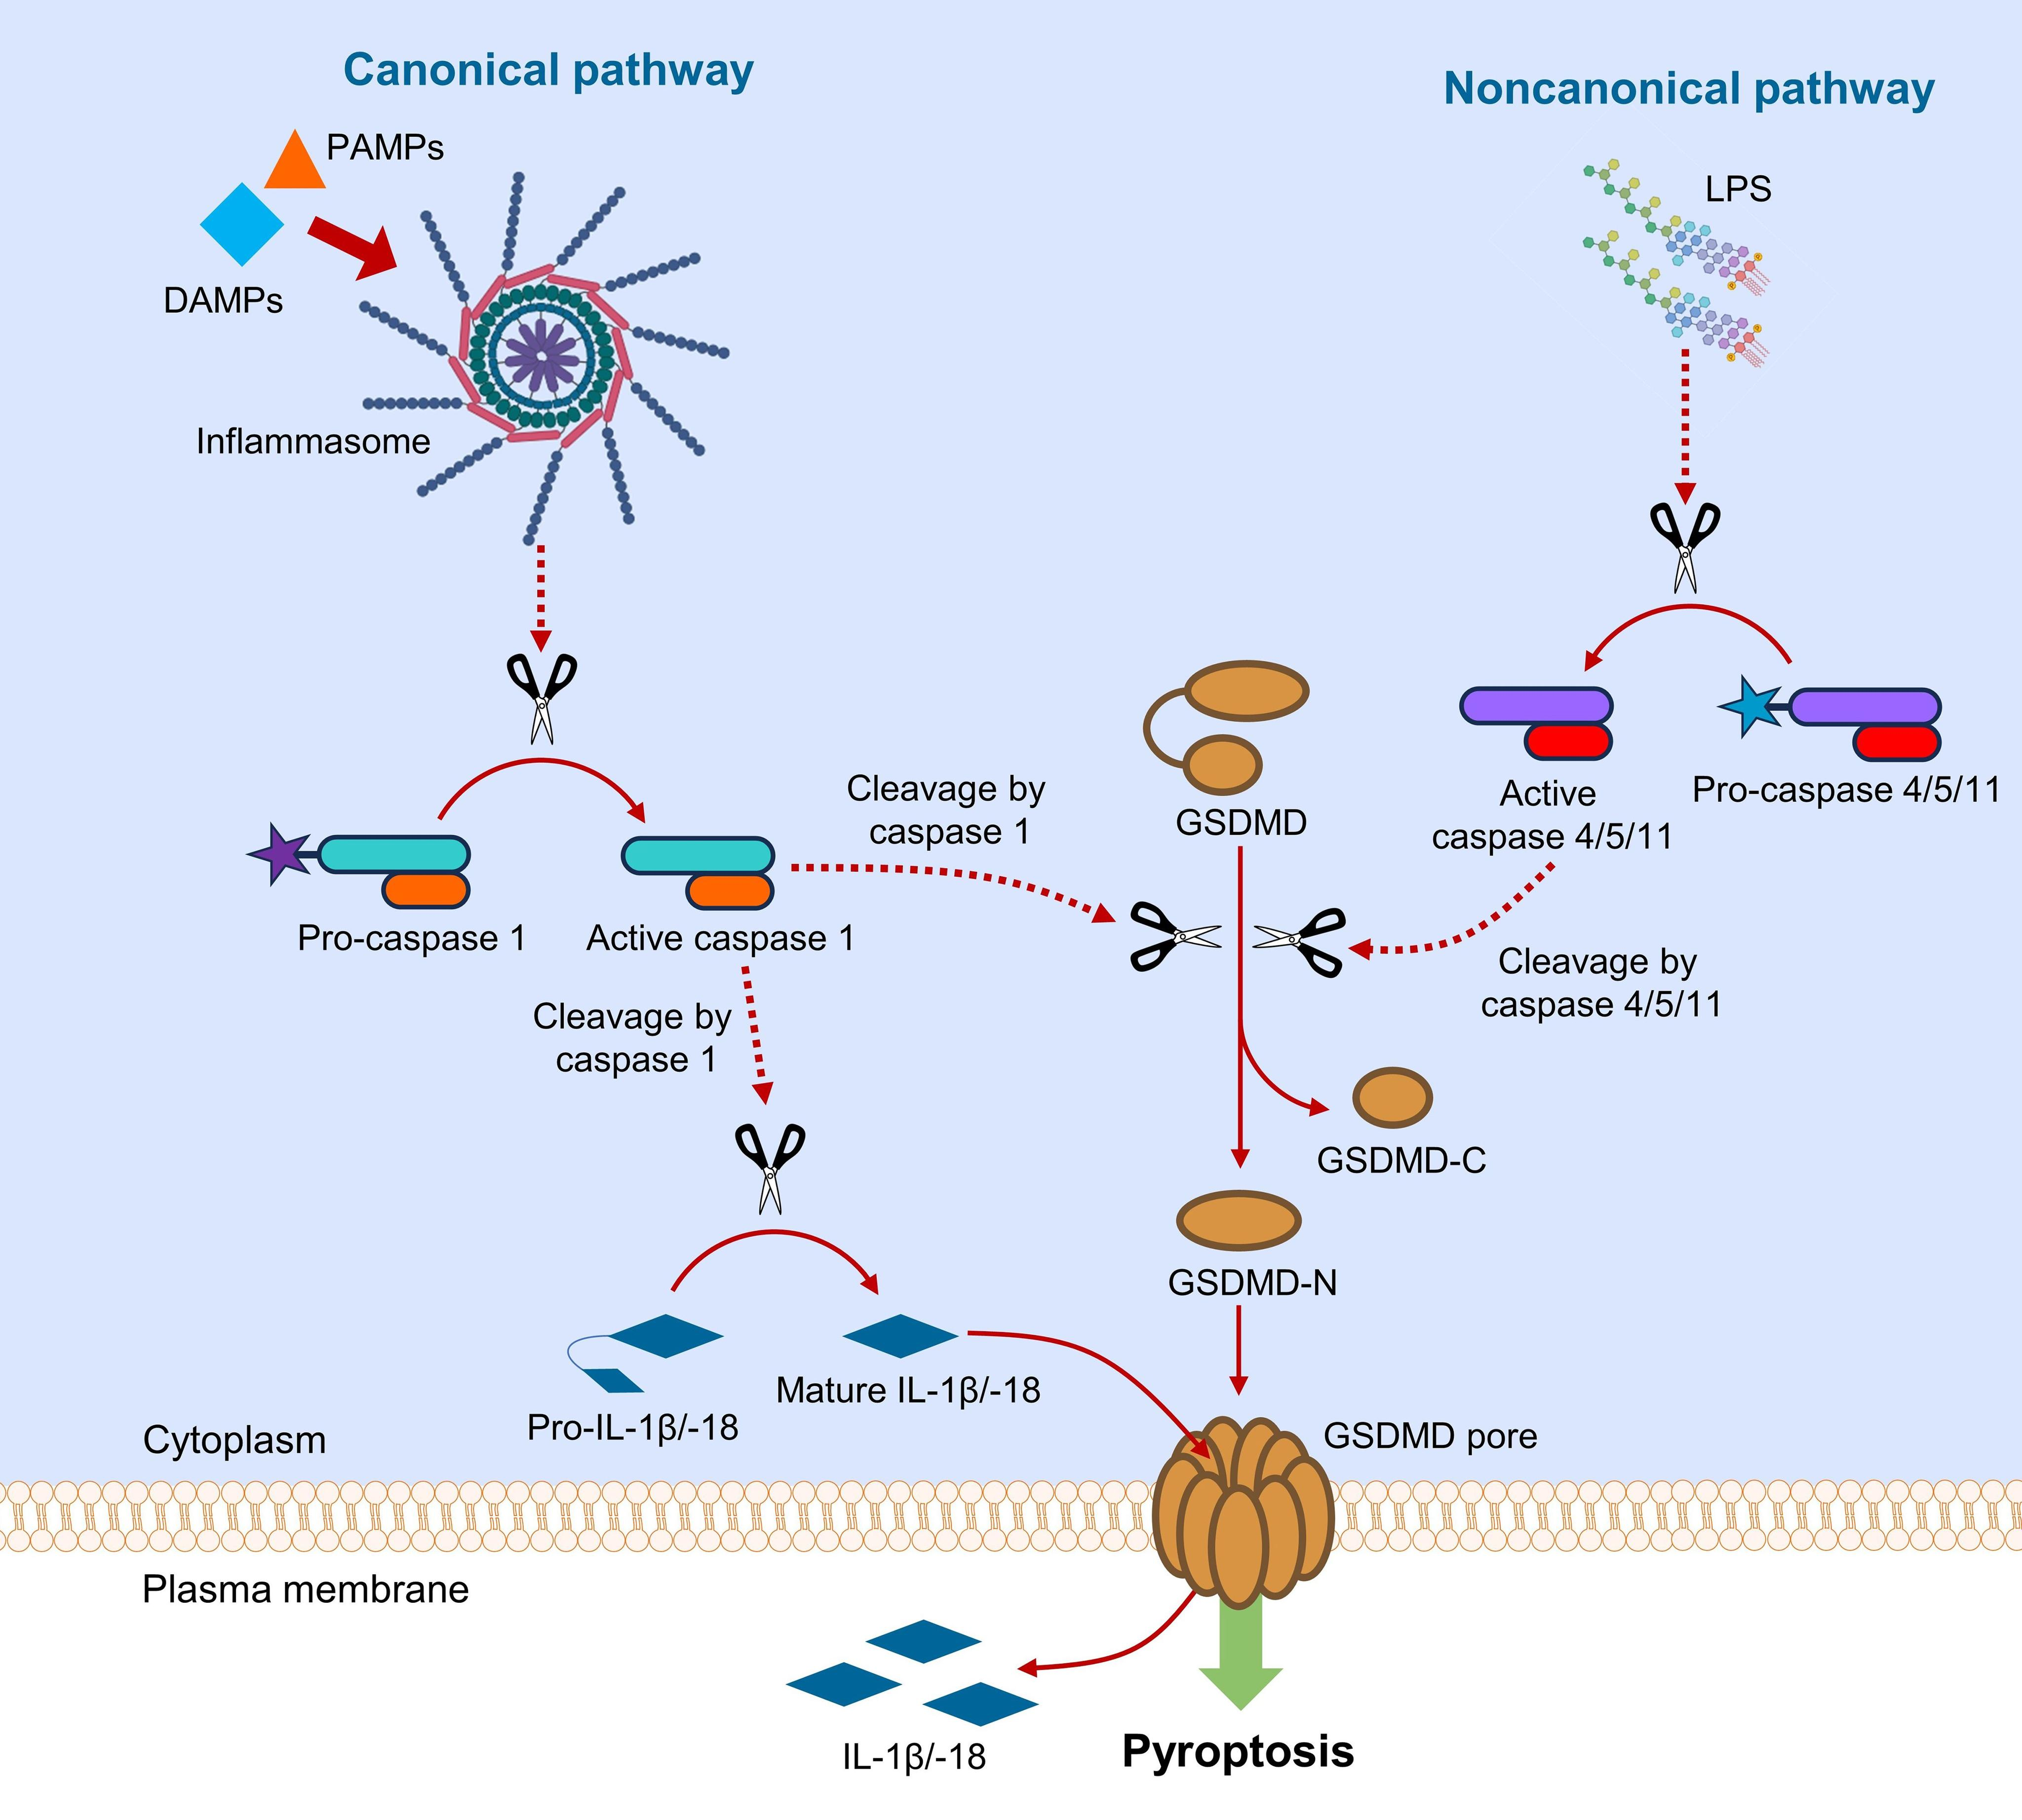
Cheng CK, Yi M, Wang L and Huang Y (2024) Role of gasdermin D in inflammatory diseases: from mechanism to therapeutics. Front. Immunol. 15:1456244. doi: 10.3389/fimmu.2024.1456244
其他不带有信号肽序列的 IL 也可以通过 TMED10 为代表的蛋白质转运机器、分泌性自噬等奇技淫巧穿过细胞膜。且已有研究表明这个过程可能存在必要的选择性。
阅读此篇 综述 了解一下 IL-1β 的十八般武艺。
血细胞生成素超家族(造血因子超家族)
- 代表成员:IL-2、IL-3、IL-4、IL-5、IL-6、IL-7、IL-9、IL11、IL-13、IL-15、IL-21、GM-CSF、G-CSF、M-CSF、EPO、TPO 等
- 受体/信号特点:JAK家族:JAK1、JAK2、JAK3、TYK2;主要通路:JAK → STAT → 基因转录
- 主要功能:造血、淋巴细胞增殖分化、免疫调节
在结构上,多为四螺旋束细胞因子,受体主要为 I型细胞因子受体。
怎么还是白细胞介素??
早年研究界没有互通的数据库,大家都各发各的,导致之间的命名存在交叉重叠。
为了维护研究领域术语的一致性(或者说,向后兼容),就沿用了已经存在的名字。
趋化因子
趋化因子 (chemokine) 是一类结构相似,分子量约8~12kD,具有趋化功能的细胞因子。
它的命名还是挺有规律的。
- 代表成员:CXCL8/IL-8、CCL2、CCL5、CXCL10、CX3CL1
- 受体/信号特点:经典受体为G蛋白偶联受体(GPCR),其偶联 Gi 调节细胞钙流、整合素活化、细胞骨架重排
- 主要功能:趋化白细胞迁移、定位、激活
以结构分类为 CXC、CC、CX3C、C四个亚家族。
肿瘤坏死因子
肿瘤坏死因子 (tumor necrosis factot, TNF) 因最初被发现其能造成肿瘤组织坏死而得名,具有极强的细胞致死作用,表达失控可能会导致组织损伤。
- 代表成员:TNF-α、LT、FasL、TRAIL、CD40L、RANKL、BAFF、APRIL
- 受体/信号特点:TNFR1:TRADD → TRAF2/5 → NF-κB / MAPK / 凋亡;TNFR2:TRAF1/2 → NF-κB;死 亡受体:Fas、TRAIL-R → caspase-8凋亡
- 主要功能:炎症、凋亡、淋巴器官发育、共刺激
从结构上看,为II型膜蛋白或可溶型三聚体;受体为TNF受体超家族,含多个CRD。
干扰素家族
病毒感染可诱导干扰素的产生,干扰素最初因其能在体外培养的细胞中干扰病毒复制而得名。
- 代表成员:I 型:IFN-α/β;II 型:IFN-γ;III 型:IFN-λ
- 受体/信号特点:II 型细胞因子受体,JAK-STAT,STAT1/2
- 主要功能:抗病毒、抗肿瘤、免疫调节、MHC 上调
干扰素在适应性免疫当中,还发挥重要的衔接作用。不仅指示了适应性免疫中 T 细胞的功能强度,还参与 MHC 上调等适应性免疫调节过程。
细胞因子的产生
体内的细胞因子天然产生途径可见下表:
NF-κB 诱导炎性细胞因子的表达
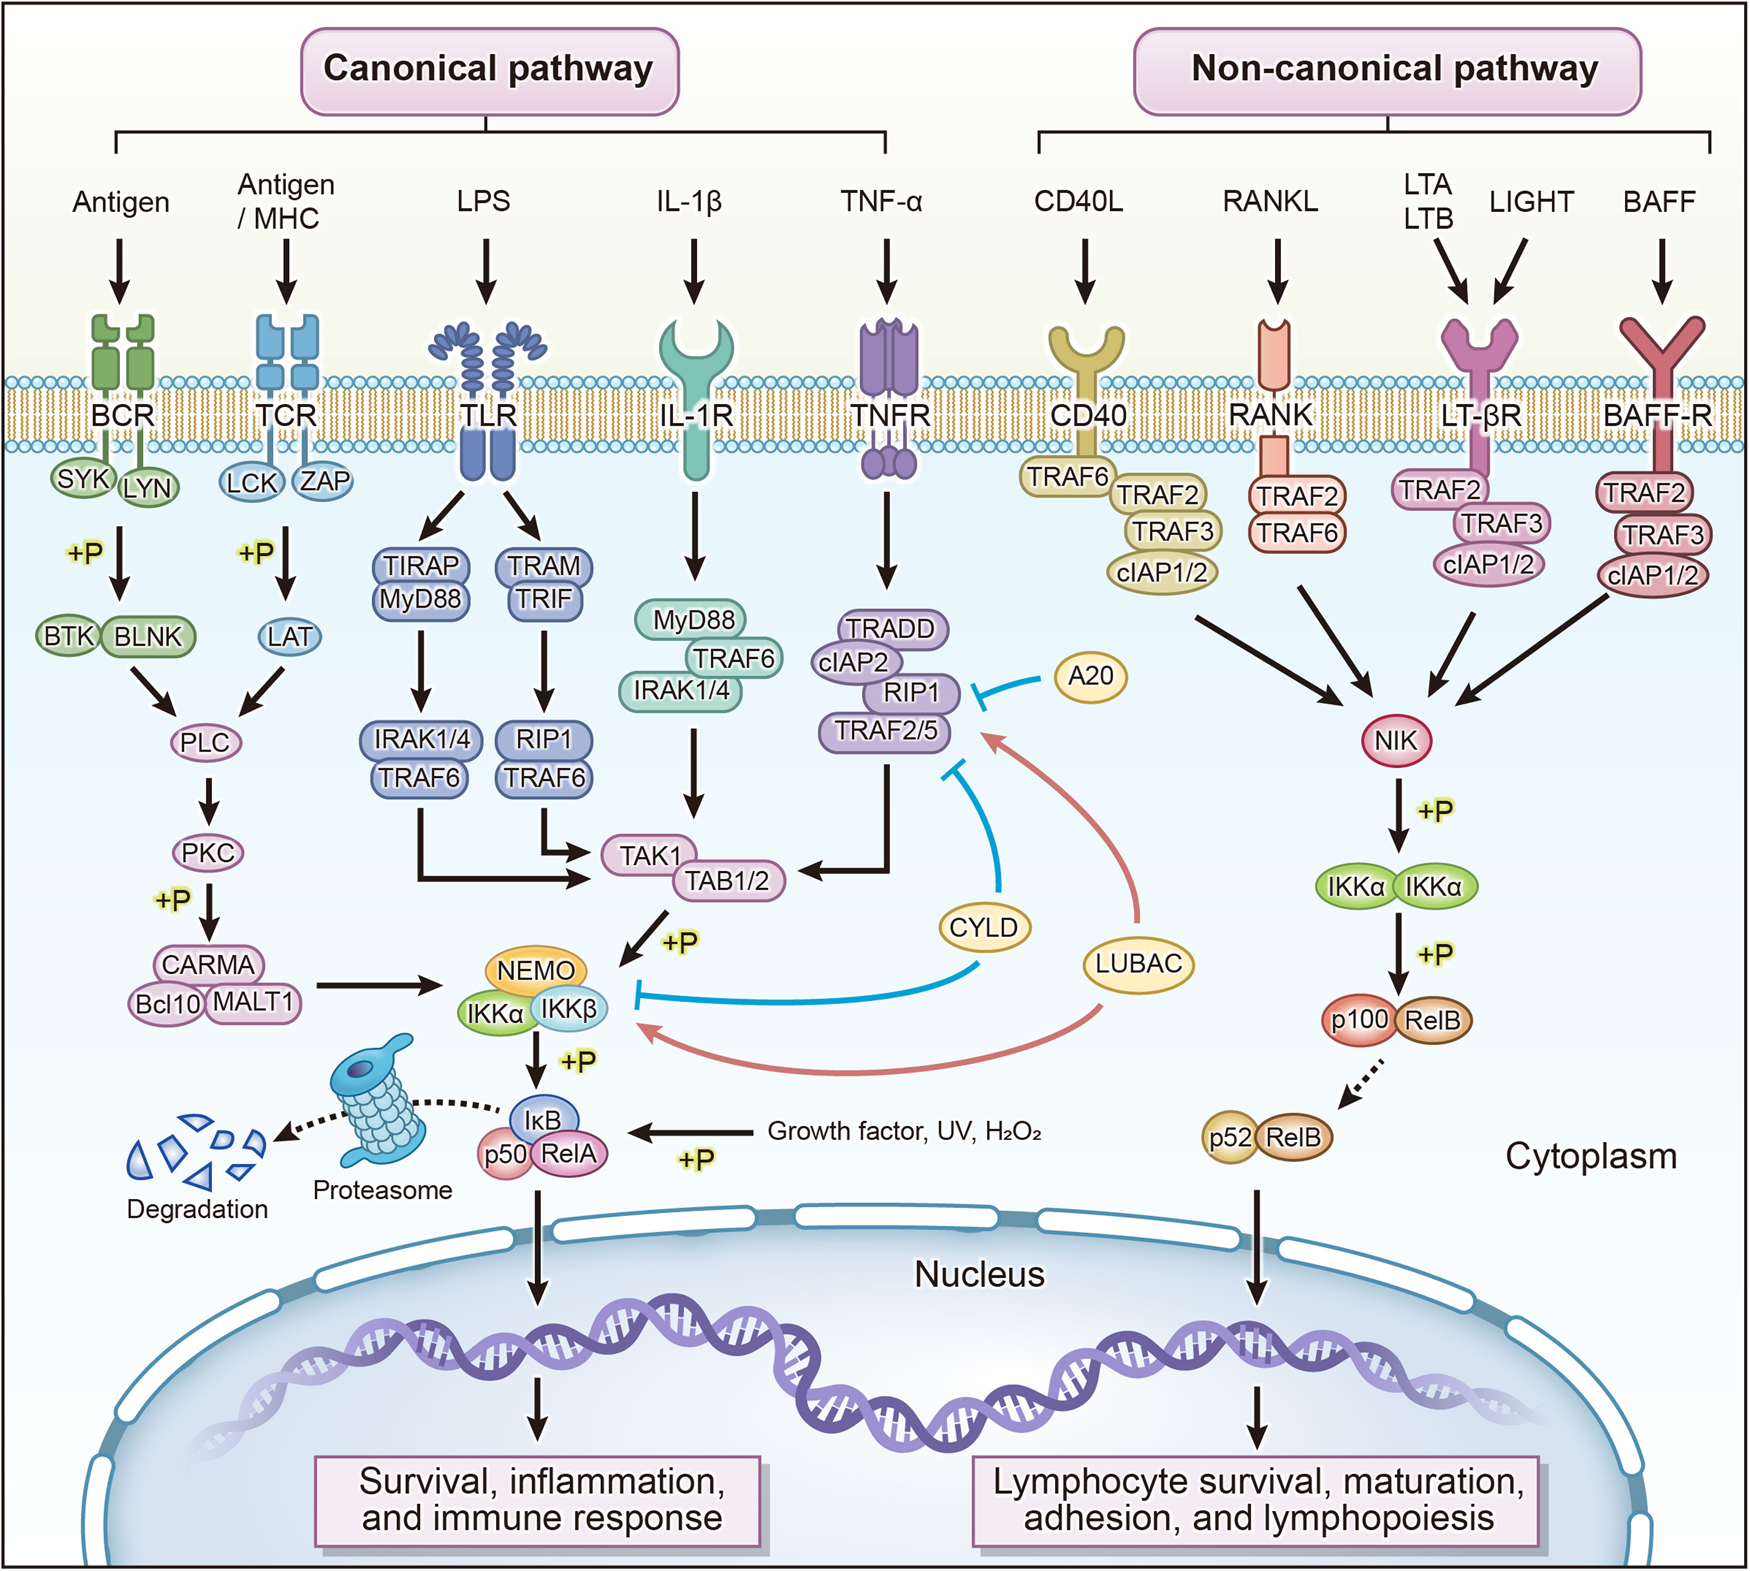
引用自 Nature
Toll样受体:
- NF-κB 由亚基 p50(NF-κB1) 和 p65(RelA) 构成。
- IkB 与 NF-κB 的结合使后者滞留于细胞质中,无法发挥入核调控功能.
- IKK 可使IKB发生磷酸化并被降解,从而释放NF-κB, 使之进入细胞核。入核的NF-κB启动促炎因子编码基因转录如TNF-α、 IL-1β 和IL-6
TNFR:
- TNF 三聚体结合并激活 TNFR1。
- TNFR1 胞内段招募 TRADD,进而募集 TRAF2/5、cIAP1/2、RIPK1等蛋白。
IRF 转录因子诱导 I 型干扰素的表达
暂略
细胞因子功能
炎症相关
炎症发生御三家:TNF-a 、 IL-1β 和IL-6
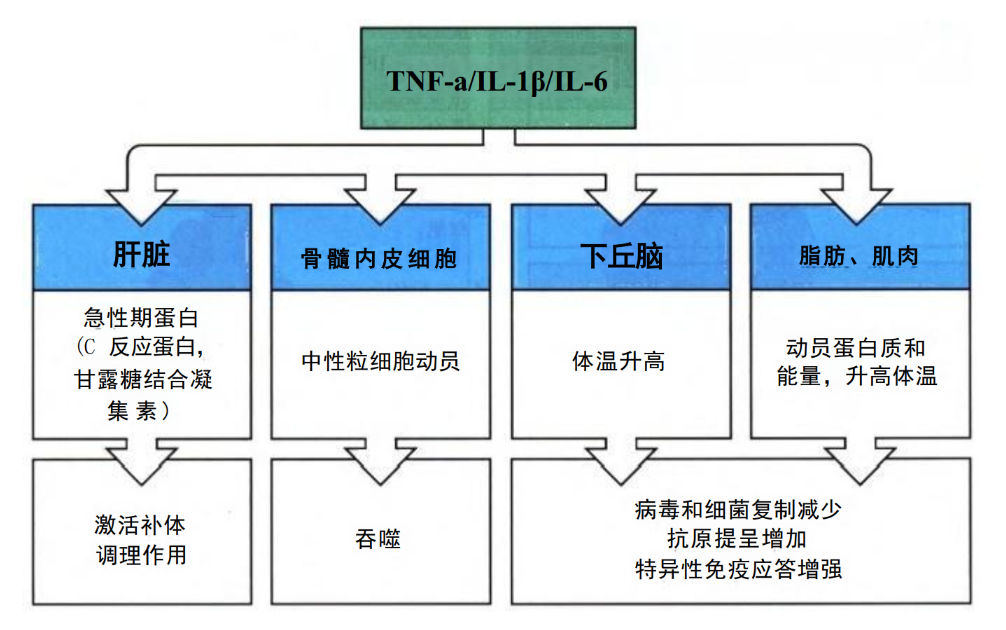
- 作用于肝脏,诱导急性期蛋白(如C反应蛋白、甘露糖结合凝集素)产生,激活补体调理作用;
- 作用于骨髓内皮细胞,动员中性粒细胞,增强吞噬;
- 作用于下丘脑,引起体温升高;
- 作用于脂肪和肌肉,动员蛋白质和能量,升高体温。
血细胞生成素超家族
血细胞生成素超家族受体与JAK 家族酪氨酸激酶相结合,激活转录因子STAT。
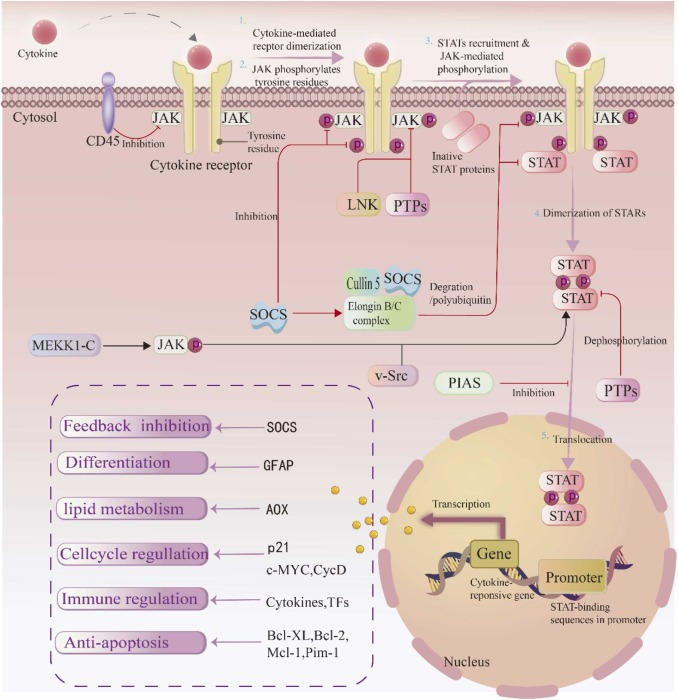
IL-2、IL-3、...、IL-21、GM-CSF、G-CSF、M-CSF、EPO、TPO 等细胞因子参与,刺激下STAT二聚体转位入核,结合并激活多种对适应性免疫至关重要的基因的转录。
趋化因子家族
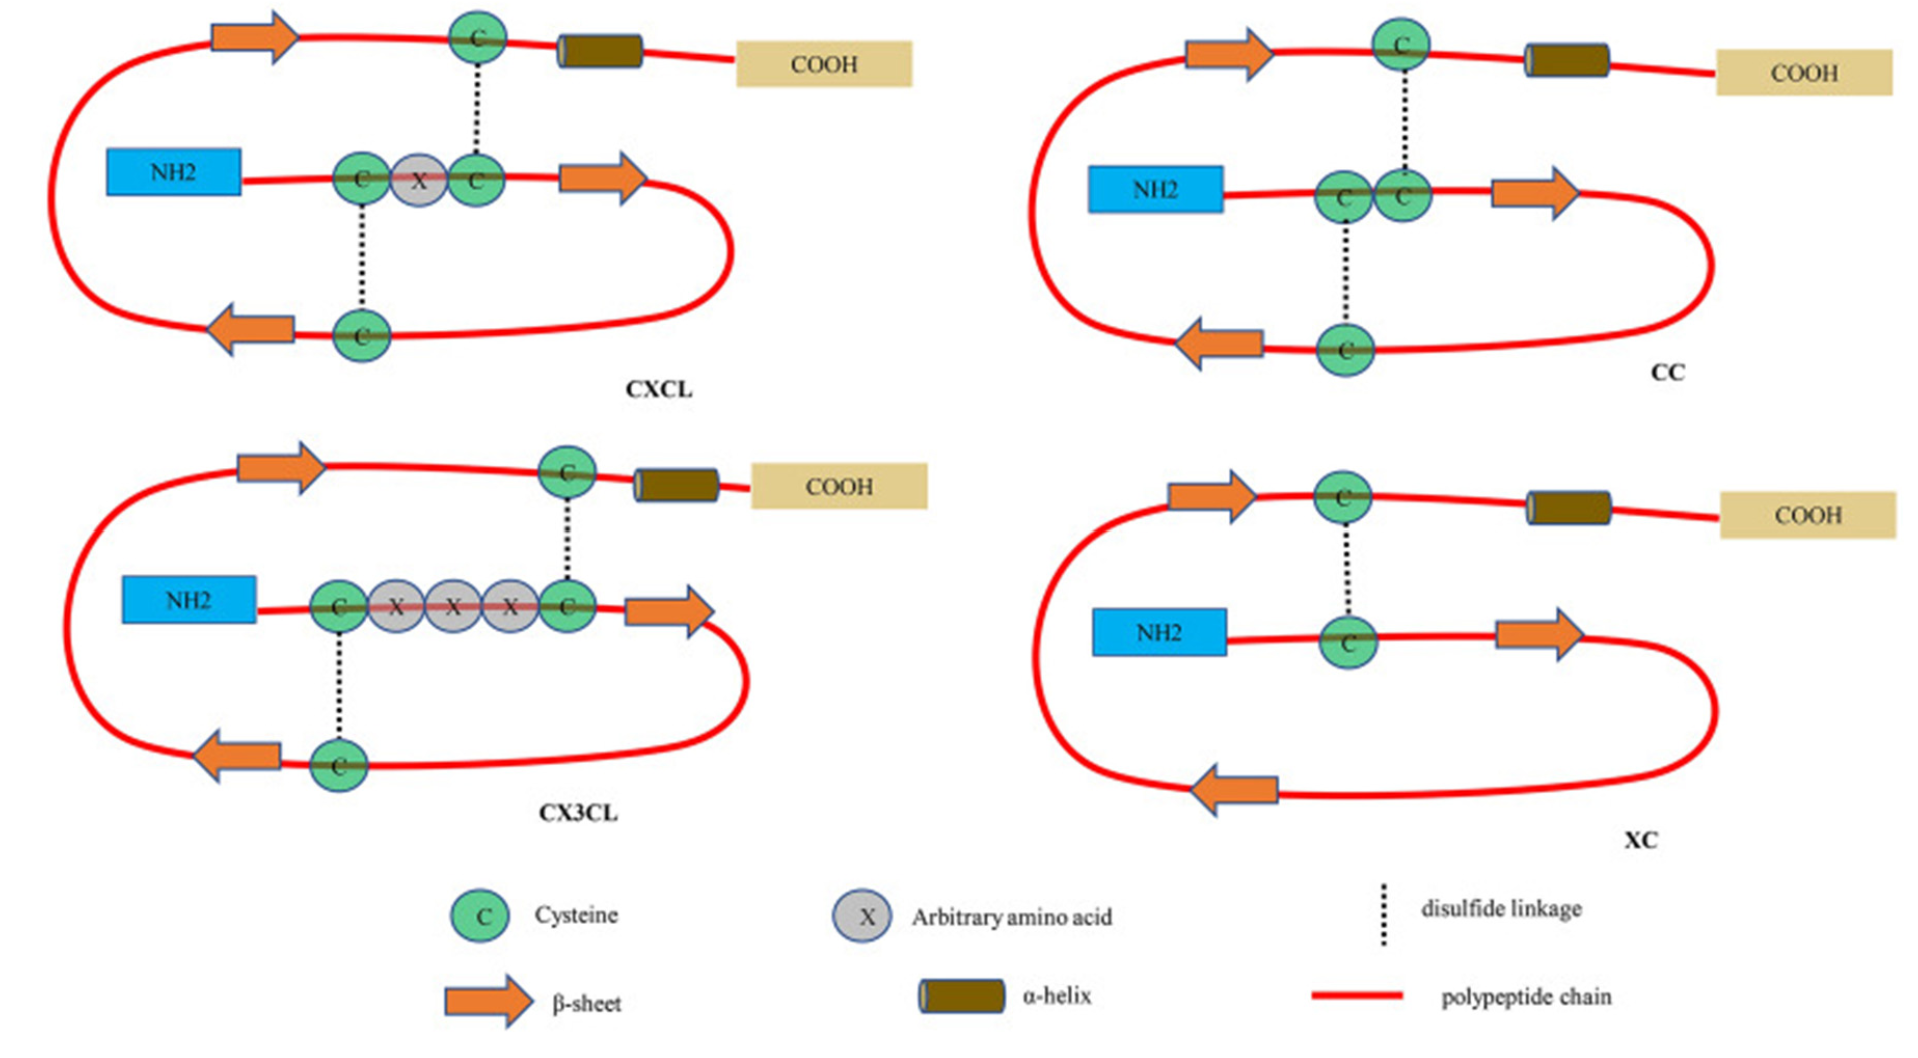
- CXC 亚家族: 氨基端 2 个 C 被 1 个氨基酸残基隔开;
- CC 亚家族: 氨基端 2 个 C 相邻;
- CXC 亚家族: 氨基端 2 个 C 被 1 个氨基酸残基隔开;
- CX3C 亚家族: 氨基端 2 个 C 被 3 个氨基酸残基隔开,羧基端跨细胞膜17
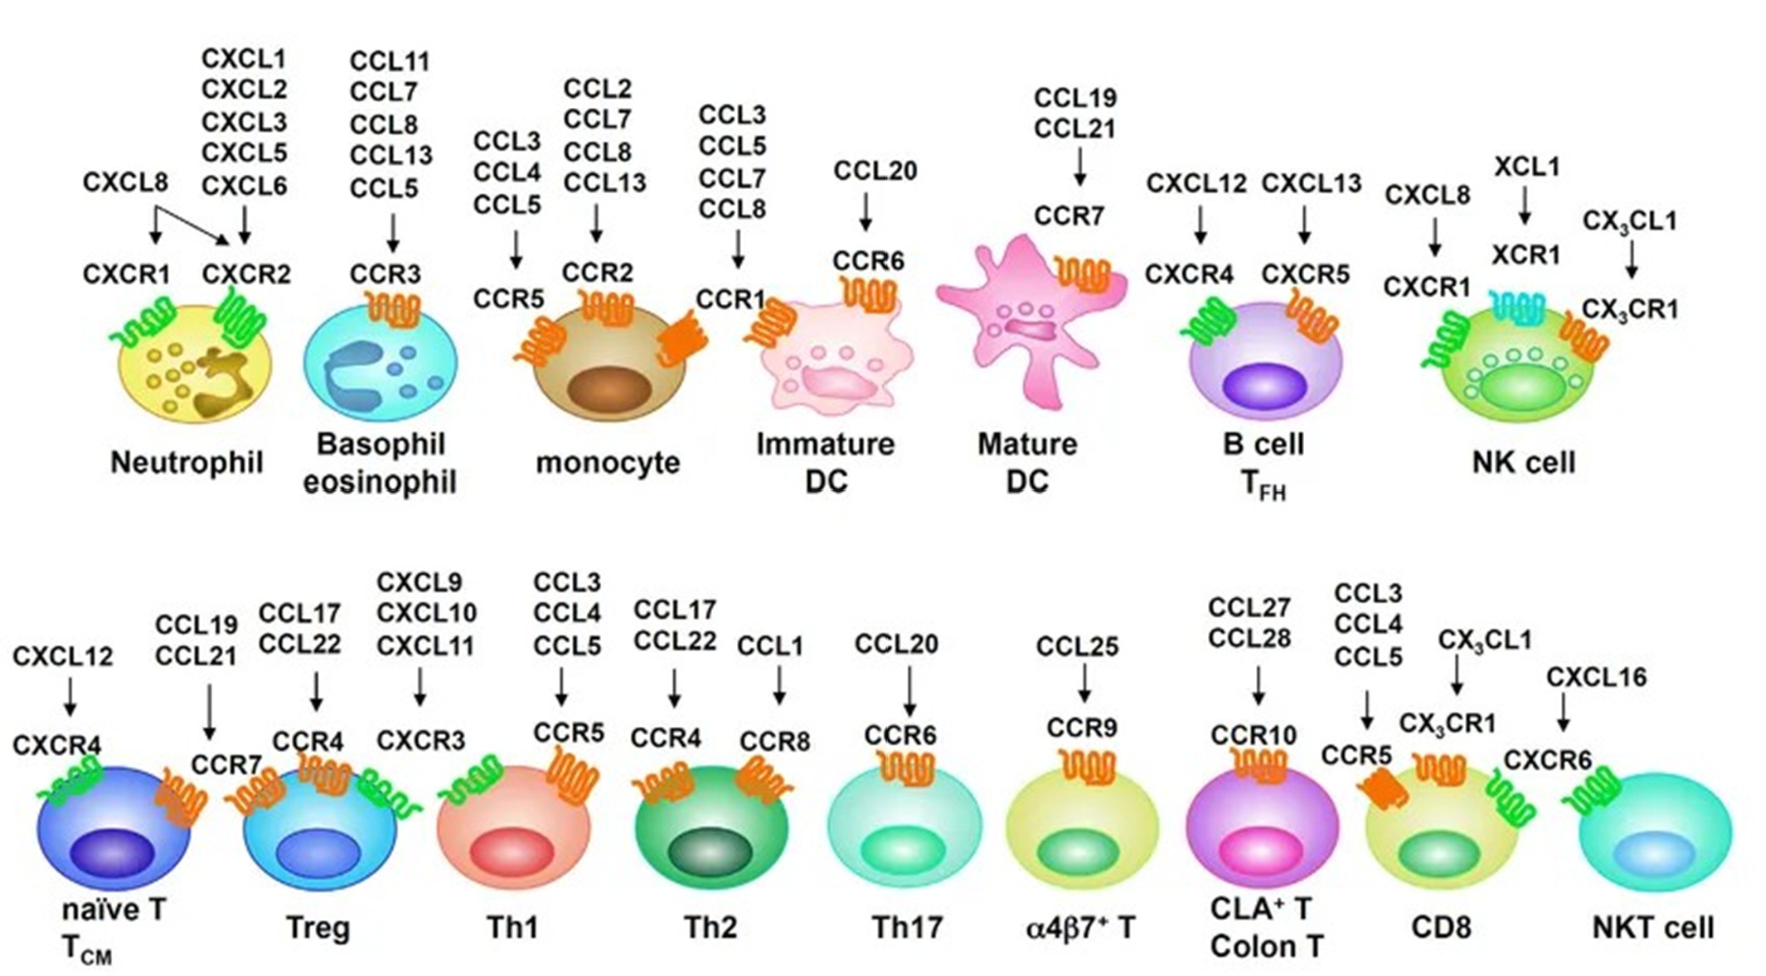
不同的趋化因子负责募集不同的免疫细胞。
例如,CCL2 通过受体 CCR2 募集单核细胞,诱导其从血液中迁移出来,成为组织巨噬细胞。CXCL8 通过受体 CXCR2 从骨髓中动员中性粒细胞,并诱导它们离开血液,迁移到外周组织中。
TNF 家族
作为极其强力的细胞因子,TNF 促进活化的吞噬细胞募集至感染部位,将感染控制在局部。
其中,TNF-α 可刺激内皮细胞表达黏附分子,有助于单核细胞和中性粒细胞等的外渗。TNF-α 另一个重要作用是刺激内皮细胞表达凝血蛋白,引起局部小血管形成血栓而截断血流。这对于防止病原体进入血液并传播到全身各器官具有重要意义。
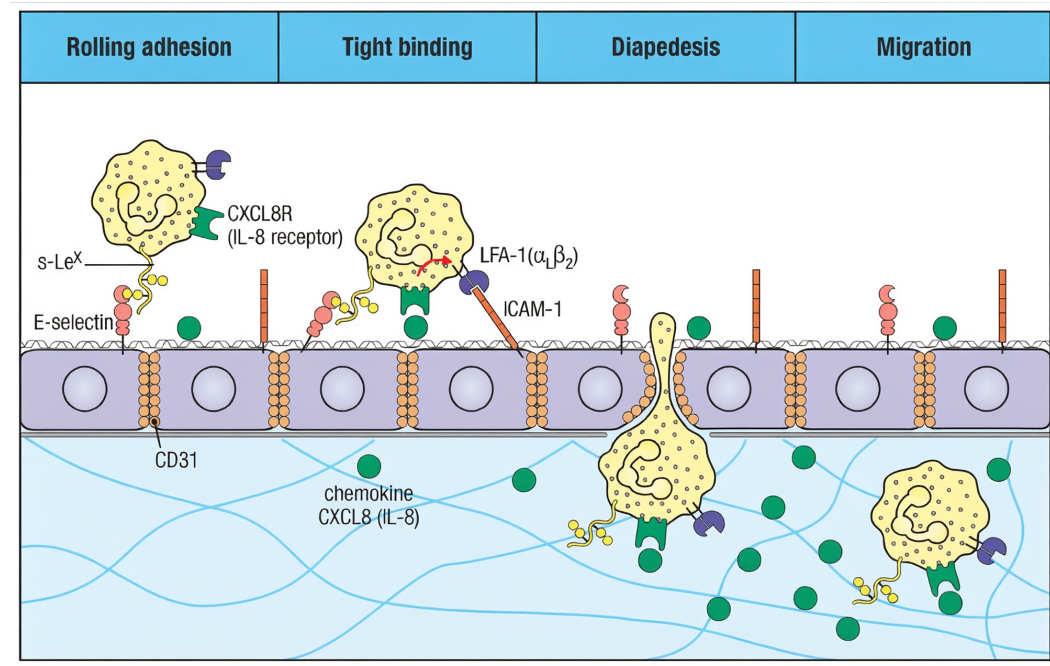
TNF 双刃剑
当出现全身感染或败血症时,在细菌的刺激下,肝脏和脾脏中的巨噬细胞释放的TNF-α进入血液,以类似的方式作用于体内所有小血管。最终引起休克,发生弥散性血管内凝血,导致凝血因子耗尽,继而发生出血,多器官衰竭,死亡率极高。
INF 家族
INF 可以诱导 MHC-I 的表达,促进更多MHCI 类分子与病毒肽形成复合物,将其提呈于感染细胞表面,有助于细胞毒性T 细胞对病毒感染细胞的识别
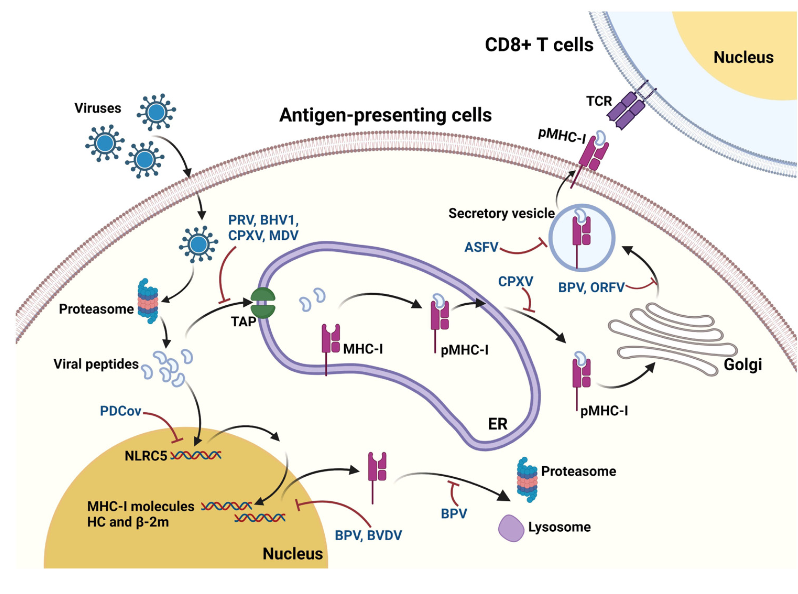
其余暂略。
核酸感受器
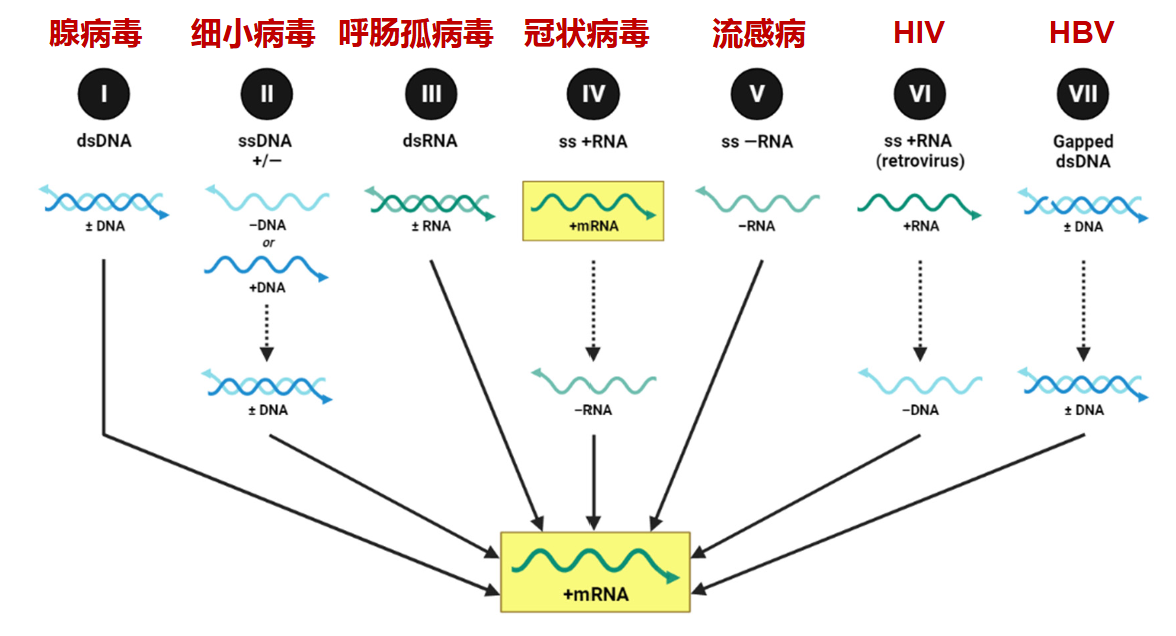
核算感受器的核心目标是 识别病毒等病原体的入侵感染。
对于病毒来说,虽然其具有多种多样的组装形式,但其必然带有核酸组分,病毒基因组以及复制中间体(如ssRNA 、ssDNA 、dsRNA、dsDNA、RNA-DNA杂交体)正是cGAS、RIG-I、MDA5、TLR等天然免疫感受器识别病毒的重要靶点。
dsDNA病毒与cGAS-STING
cGAS-STING 经典途径如下:
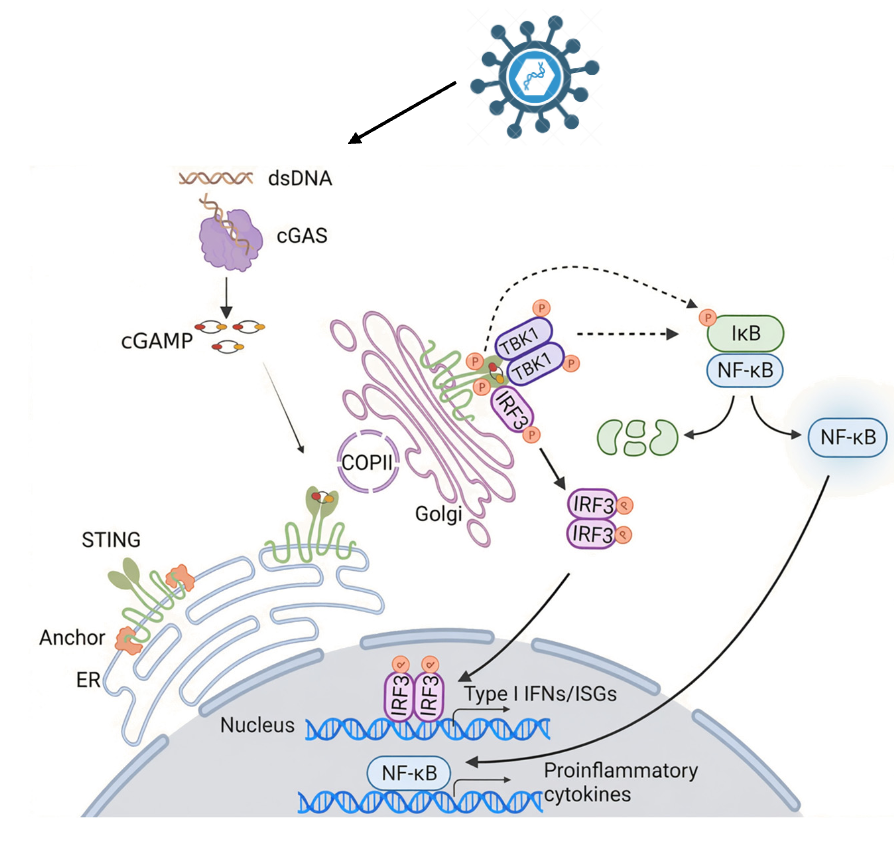
其参与到如下病毒的感染探测:
- HSV-1(单纯疱疹病毒 1 型)
- HSV-2
- MCMV / HCMV(鼠/人巨细胞病毒)
- 痘苗病毒(Vaccinia virus)
- 腺病毒(Adenovirus)
- HBV(乙型肝炎病毒)
- EBV / KSHV(EB 病毒/卡波西肉瘤疱疹病毒)
- ASFV(非洲猪瘟病毒)
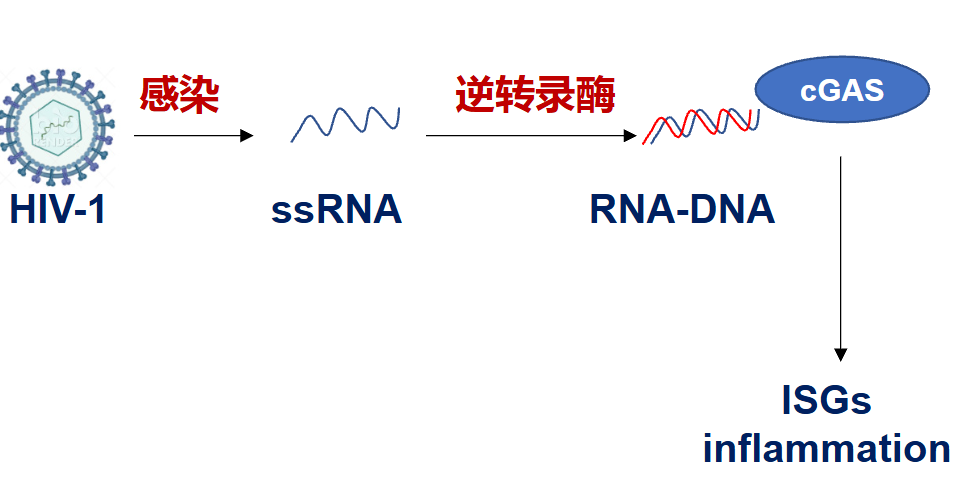
对于逆转录病毒来说,cGAS 也有用武之地,在逆转录病毒的 ssRNA 转录为 RNA-DNA 杂交链时,cGAS 会参与对其的识别过程,触发 cGAS-STING 信号通路。
经典的病毒对象如下:
- HIV-1
- HIV-2 / SIV
- 鼠白血病病毒 (MLV)
- HTLV-1
RIG-I 样受体识别胞质病毒 RNA
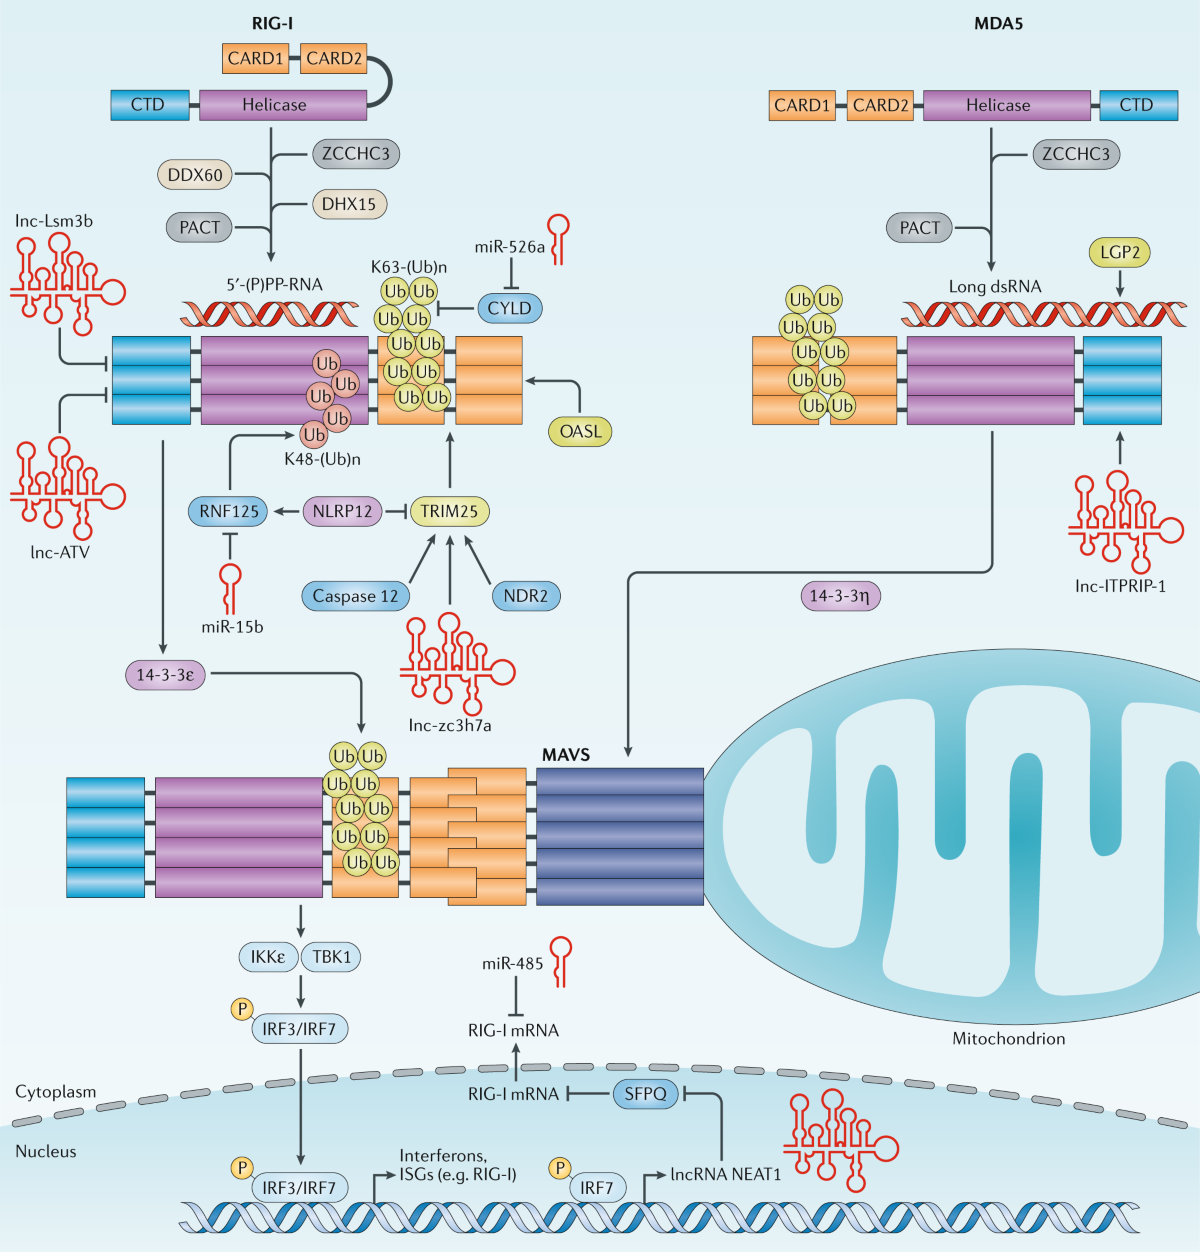
- 病毒在胞质中复制时,会产生带有5'三磷酸(5'ppp)的RNA。
- RIG-I识别这些RNA后,构象发生变化,CARD结构域暴露。
- RIG-I发生K63连接的泛素化,CARD结构域聚集,与线粒体上的MAVS结合。
- MAVS聚集后,招募TRAF,激活TBK1和IKK,最终激活IRF3和NF-κB,诱导干扰素和促炎因子表达。
TLR 与核酸识别
识别核酸的 TLR(TLR3、TLR7、TLR8、TLR9)主要分布在内体。
核酸感受器识别自我和非我机制
空间隔离 (区室化)
细胞假定正常的自我 DNA 应当乖乖呆在细胞核内,被核膜隔离,如果双链 DNA 或 DNA-RNA 杂交链出现在胞质内,那必定是秋裤套棉裤——必定有缘故。
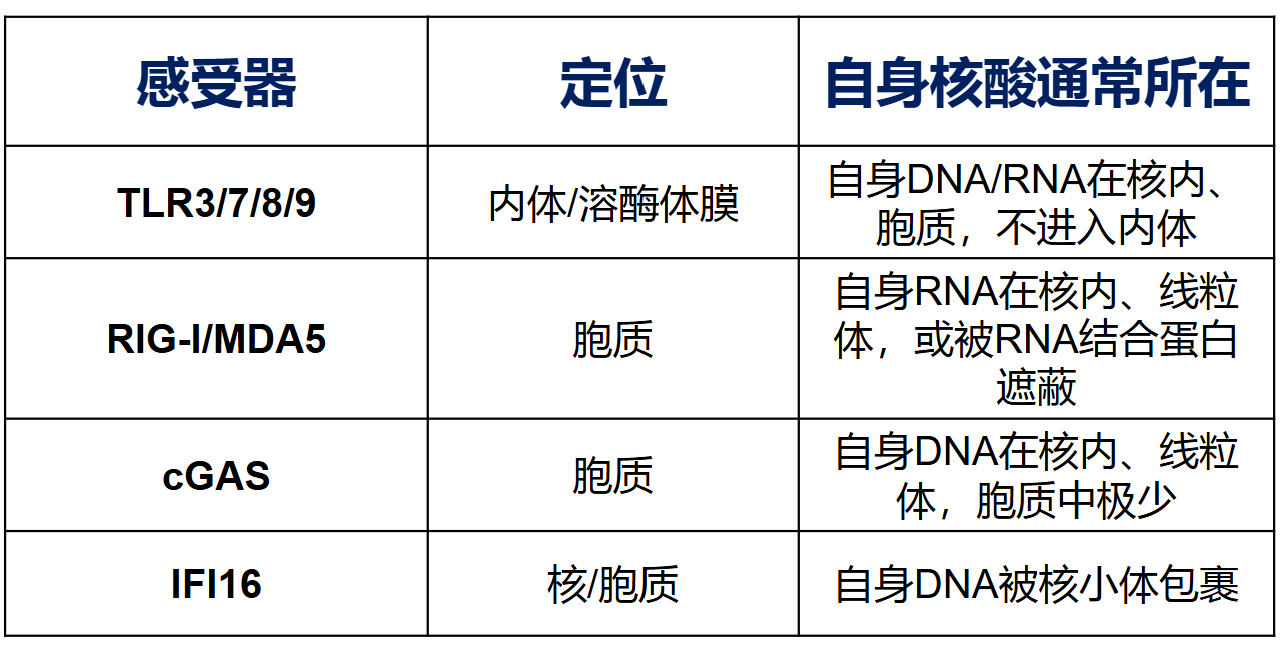
- TLR9在内体中,只有被内吞的病原体DNA才可能接触;自身DNA即使进入内体,也常被DNase II降解。
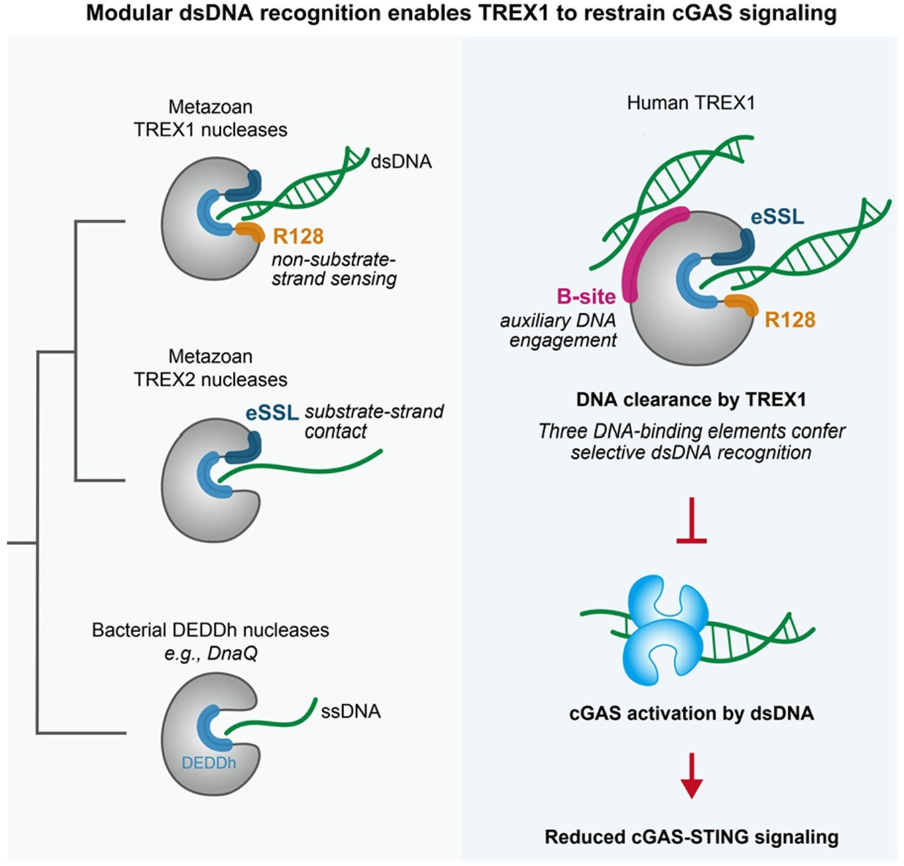
- cGAS在胞质,自身DNA泄漏到胞质才会激活;正常会被TREX1等核酸酶会迅速清除。
化学修饰差异
细胞假定自我的核酸应当有一定预置的特征,而病毒等外来入侵者则不带这些特征。
- DNA甲基化
- TLR9识别未甲基化CpG DNA。
- 哺乳动物DNA的CpG高度甲基化,细菌/病毒DNA则多为未甲基化。
- RNA帽结构
- RIG-I识别5′三磷酸(5′ppp)或5′二磷酸(5′pp)的RNA。
- 宿主mRNA有m7G帽,不激活RIG-I;病毒RNA常无帽或带5′ppp。
- RNA编辑
- ADAR1将自身dsRNA中的腺苷(A)脱氨为肌苷(I),标记为“自我”。
- ADAR1缺陷 → 自身dsRNA被MDA5识别 → Aicardi-Goutières综合征。
- 2′-O-甲基化
- 宿主mRNA和某些病毒RNA有2′-O-甲基化,可逃避MDA5/RIG-I识别。
- 缺乏该修饰的RNA免疫原性更强。
序列与结构特征
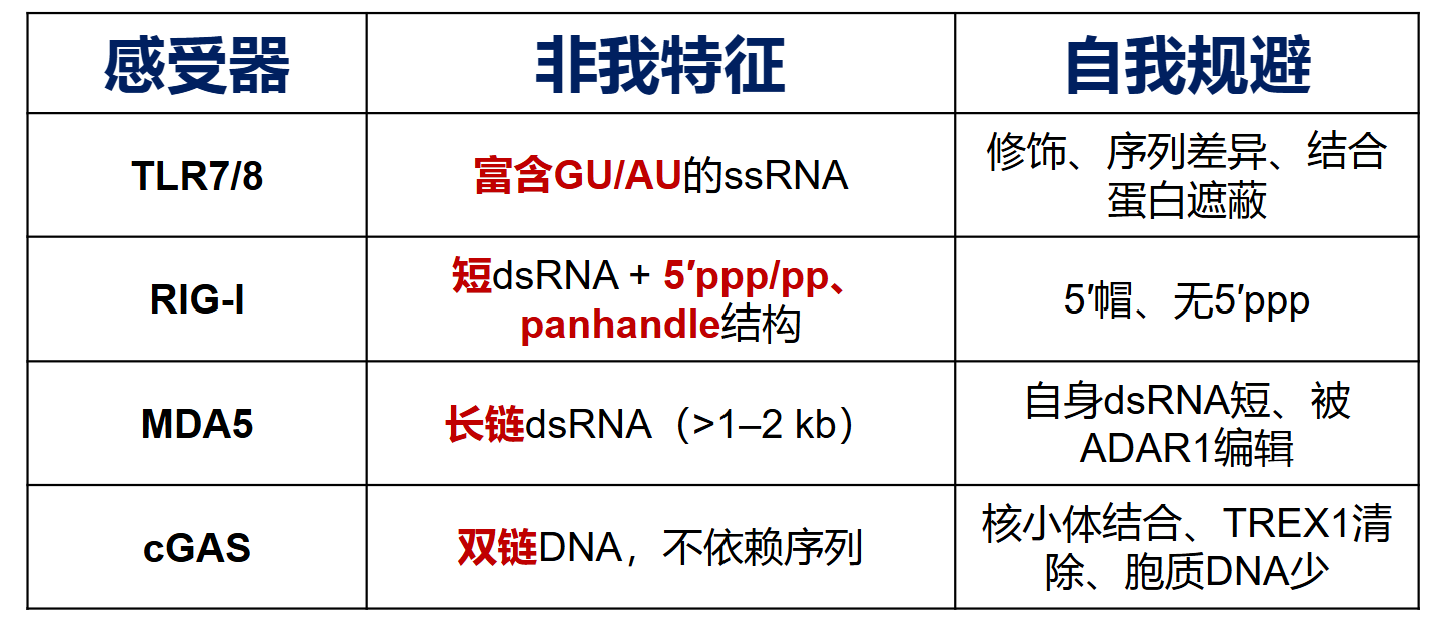
- MDA5对长dsRNA的偏好,使其主要响应病毒复制中间体,而非宿主短dsRNA。
- cGAS虽不依赖序列,但自身DNA通常被核小体包裹,且胞质中很快被清除。
长度与多聚化阈值
- MDA5需要长dsRNA才能协同组装成长纤维,短dsRNA不能有效激活。
- cGAS与长DNA结合后形成阶梯状寡聚体,短DNA激活效率低。
- RIG-I需要多聚化及K63泛素化才能高效激活。
阈值效应 让机体不至于因为自身小规模的核酸泄露不会引起不必要的强烈反应。
核酸构象
细胞内存在识别左手螺旋 Z构象 的 DNA 双螺旋的能力。
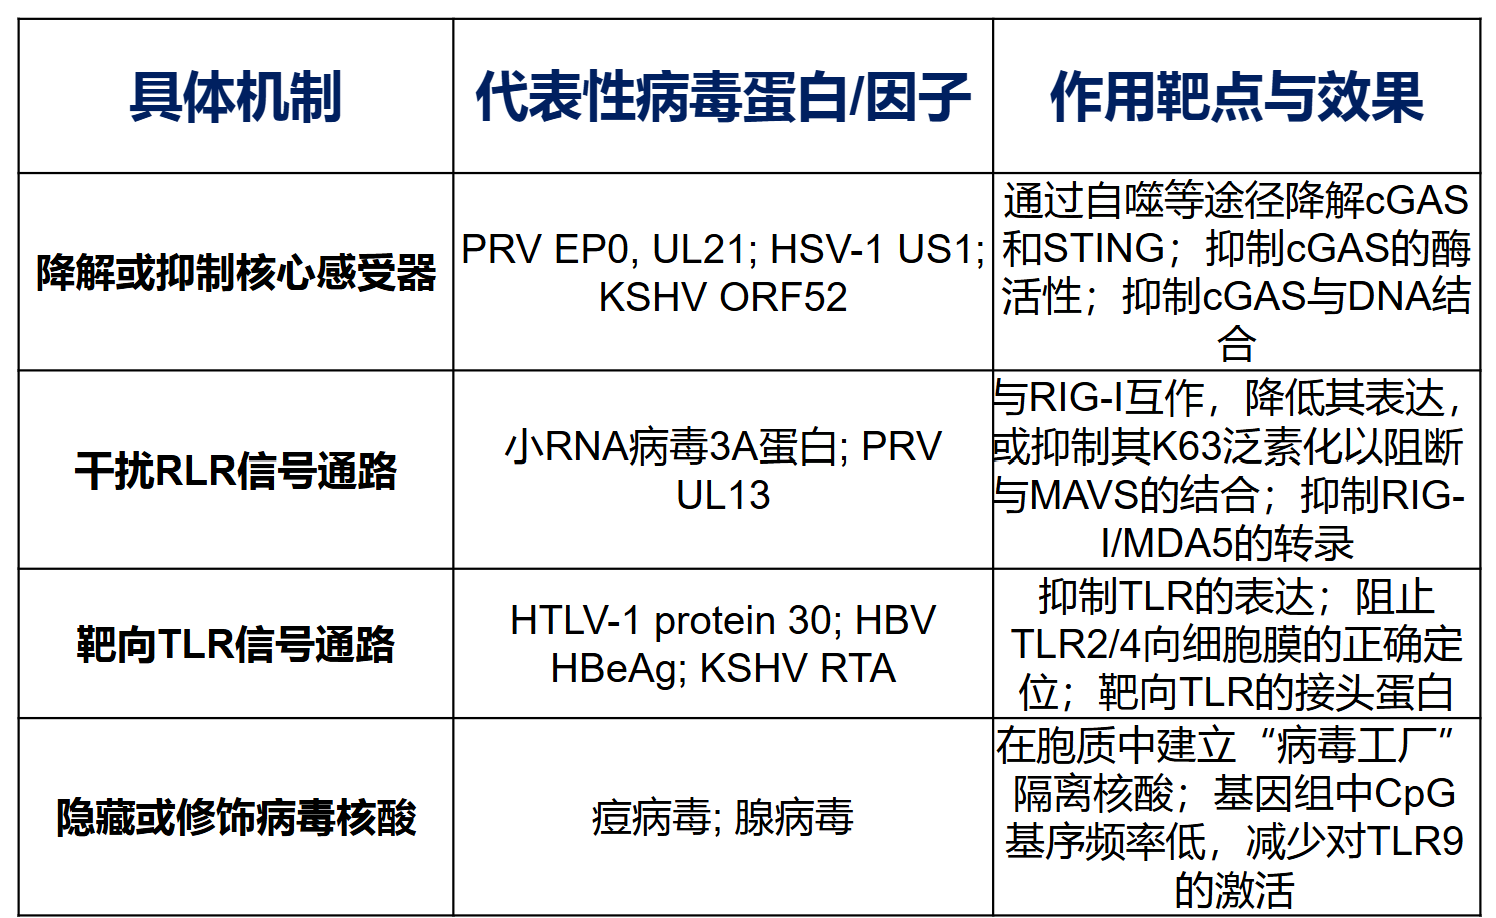
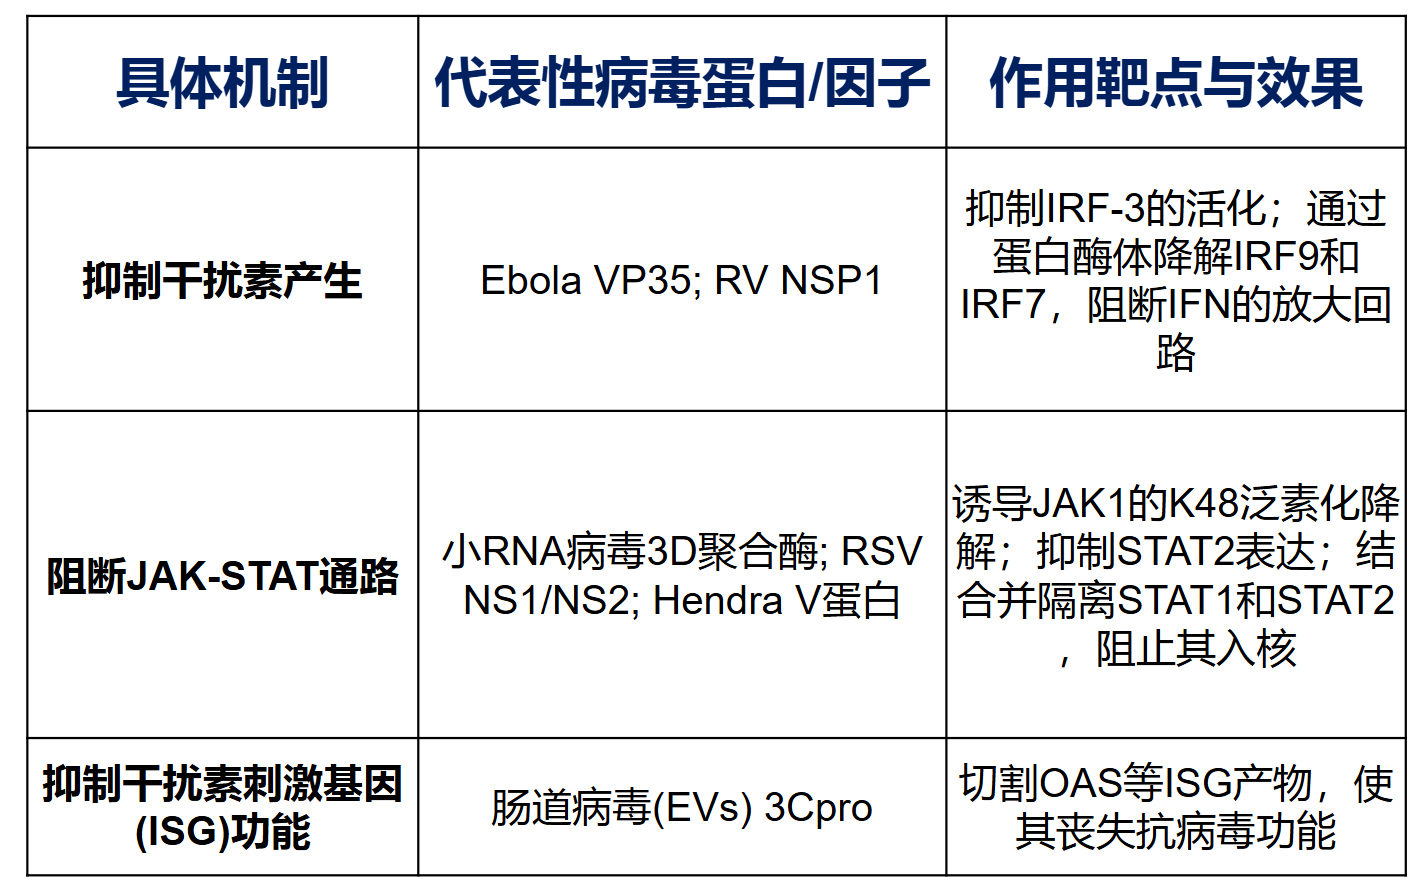
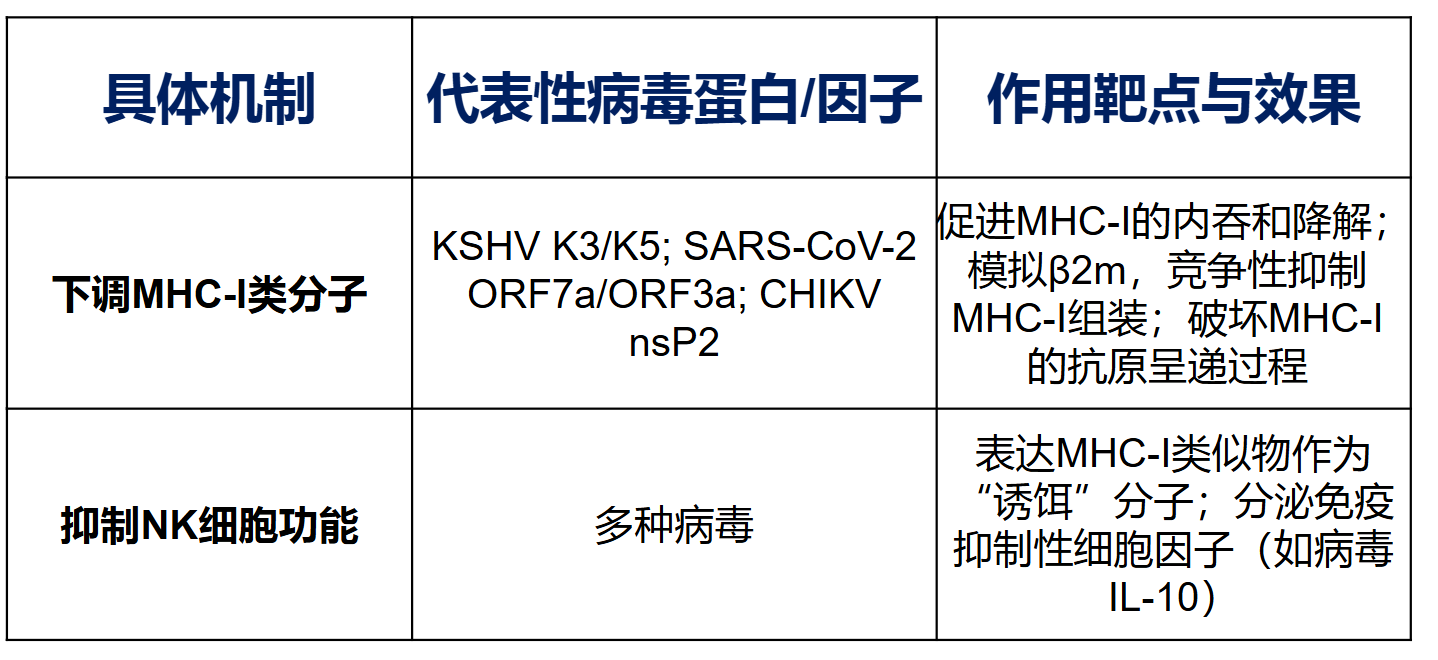
病毒逃避宿主免疫监控
Note
了解一下
核酸感知层面
干扰素信号层面
适应性免疫层面
核酸感受器异常激活与疾病
异常激活原因
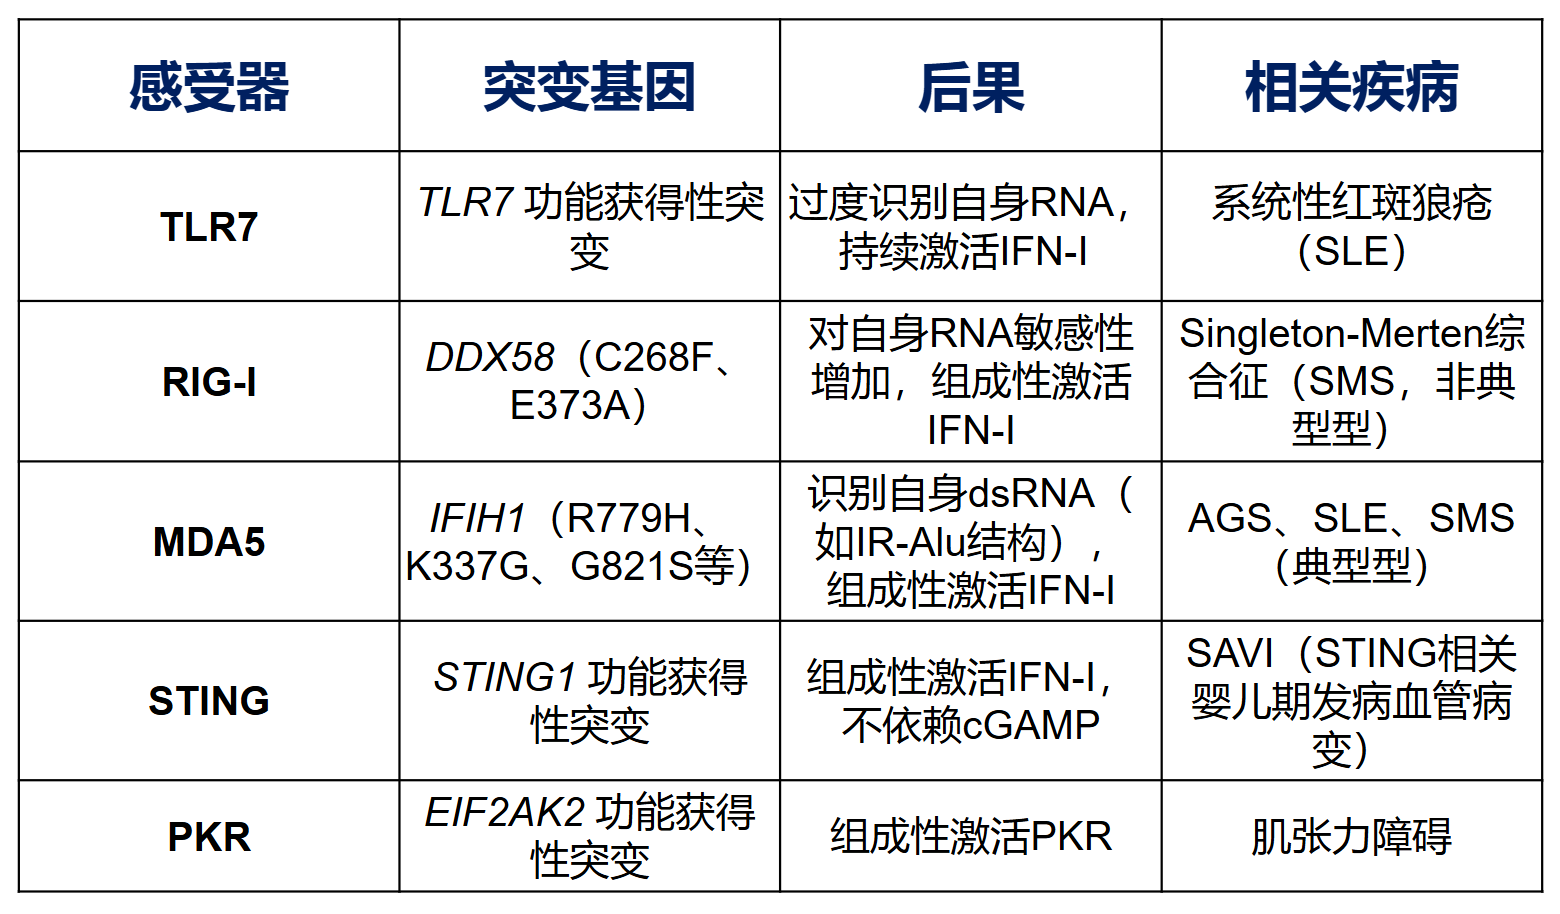
核酸清除功能障碍、功能获得性突变和内源性配体增多等因素都可能诱发核酸感受器的异常激活。
对于功能获得性突变:
如下核酸酶功能异常可能导致异常激活:
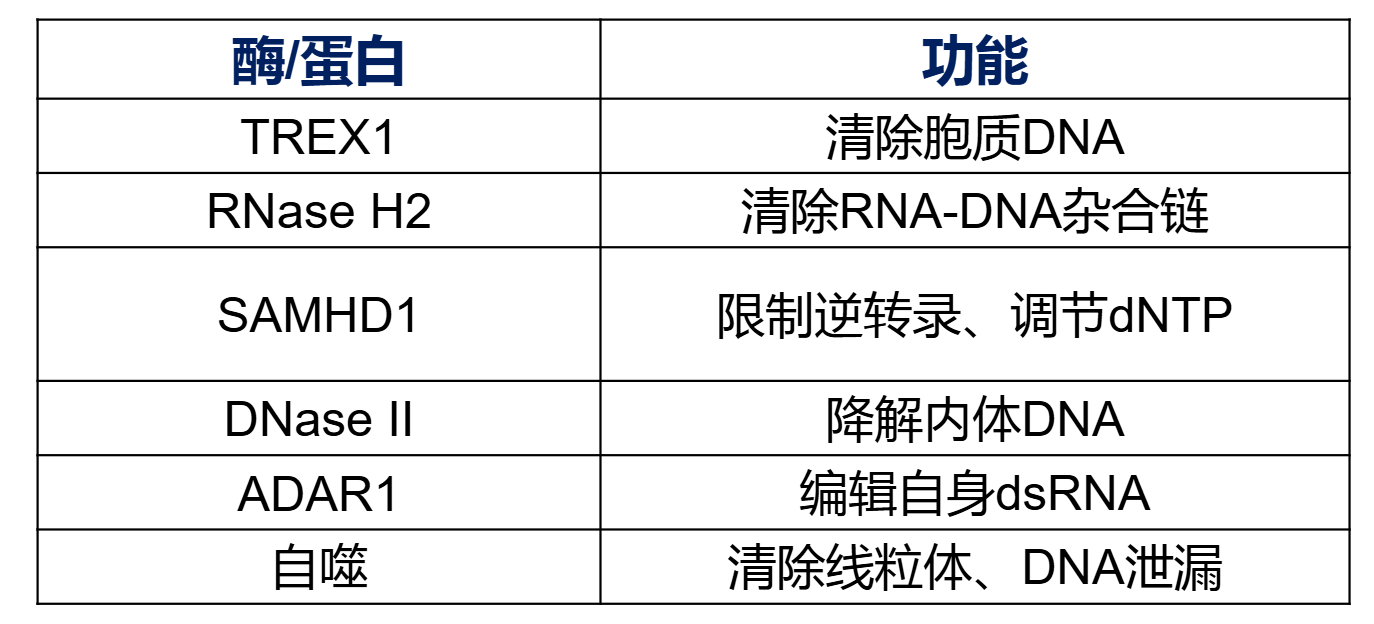
其中 TREX1核酸酶功能异常和 Aicardi-Goutières综合征 (AGS) 息息相关,cGAS 敲除可完全缓解此病症。
内源性配体增多原因:
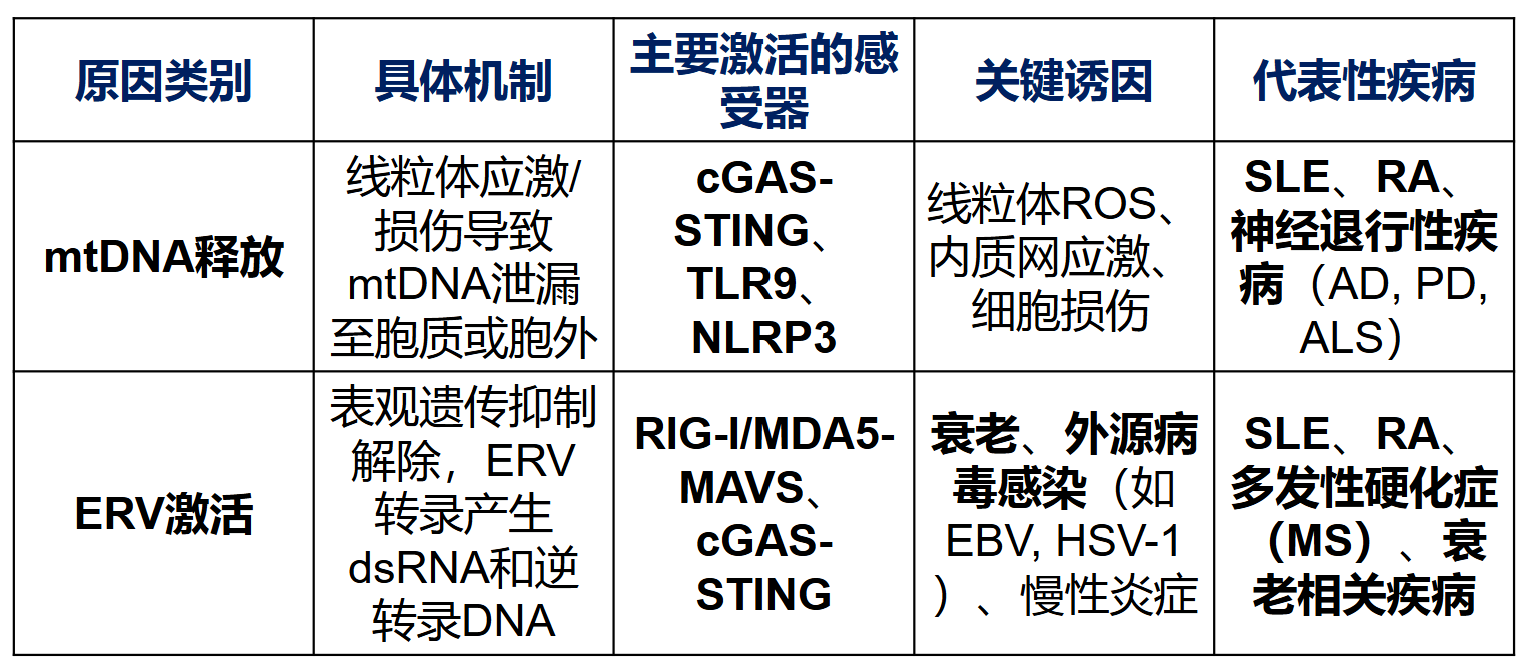
其中 mtDNA 是体内最容易发生泄露的内源性核酸,线粒体相关应激(衰老、神经退行性疾病)极容易引发异常激活。