T 细胞介导的细胞免疫应答
在上一节,我们学习了相对完整的淋巴细胞发育流程,今天我们将站在前日的肩膀上继续推进。这节课,让我们从 Naive T cell 开始。
T 细胞免疫应答全流程实况!
T 细胞完成免疫应答全流程需要几步?这听起来似乎像把大象塞进冰箱的问题,但我们可以通过追踪 T 细胞具体状态的改变划分为以下过程:
- 识别抗原 → 激活 → 克隆扩增 → 分化 → 发挥效应
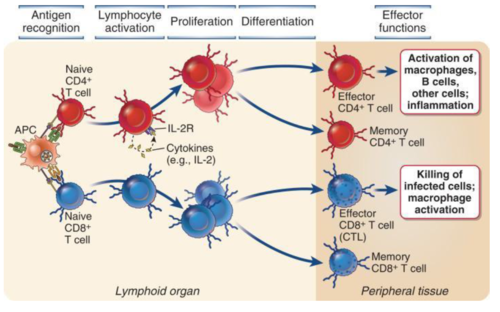
Naive T cell 主要在 淋巴结、脾和黏膜相关淋巴组织 等外周淋巴器官内发生激活,即抗原刺激至发挥效应的活化过程。
Naive T cell
Naive,可以翻译为幼稚,或者初始。Naive T cell,即幼稚T细胞或初始T细胞。
正如前文所说,我们这里站在了上一节的肩膀之上,虽然被称作 Naive T cell,但实际上其是发育成熟的 T cell。但此时的 T 细胞还没有被所适合的抗原进行过刺激,其处在一种未活化的初始状态,故被称作 Naive。
戍边 T 细胞与它们的工作单位
当然问题来了,机体为什么要安排 Naive T cell 前往外周淋巴器官就职任命?这里有两方面的考量:
- 中枢免疫器官不适合作为抗原激活场所,你也不想 APC 带着一堆莫名其妙的抗原来中枢免疫器官找细胞吧?
- 直接在外周血液与组织中寻找抗原则是大海捞针,针对某一种抗原的 Naive T cell 数量很少,如果让其在组织之间游荡很可能发生 “君の名字”。
将组织中的抗原通过淋巴管引流至淋巴结,血液中的抗原引流经脾脏,从而让 Naive T cell 有一个集中的 检查站 参与对潜在抗原的筛查。
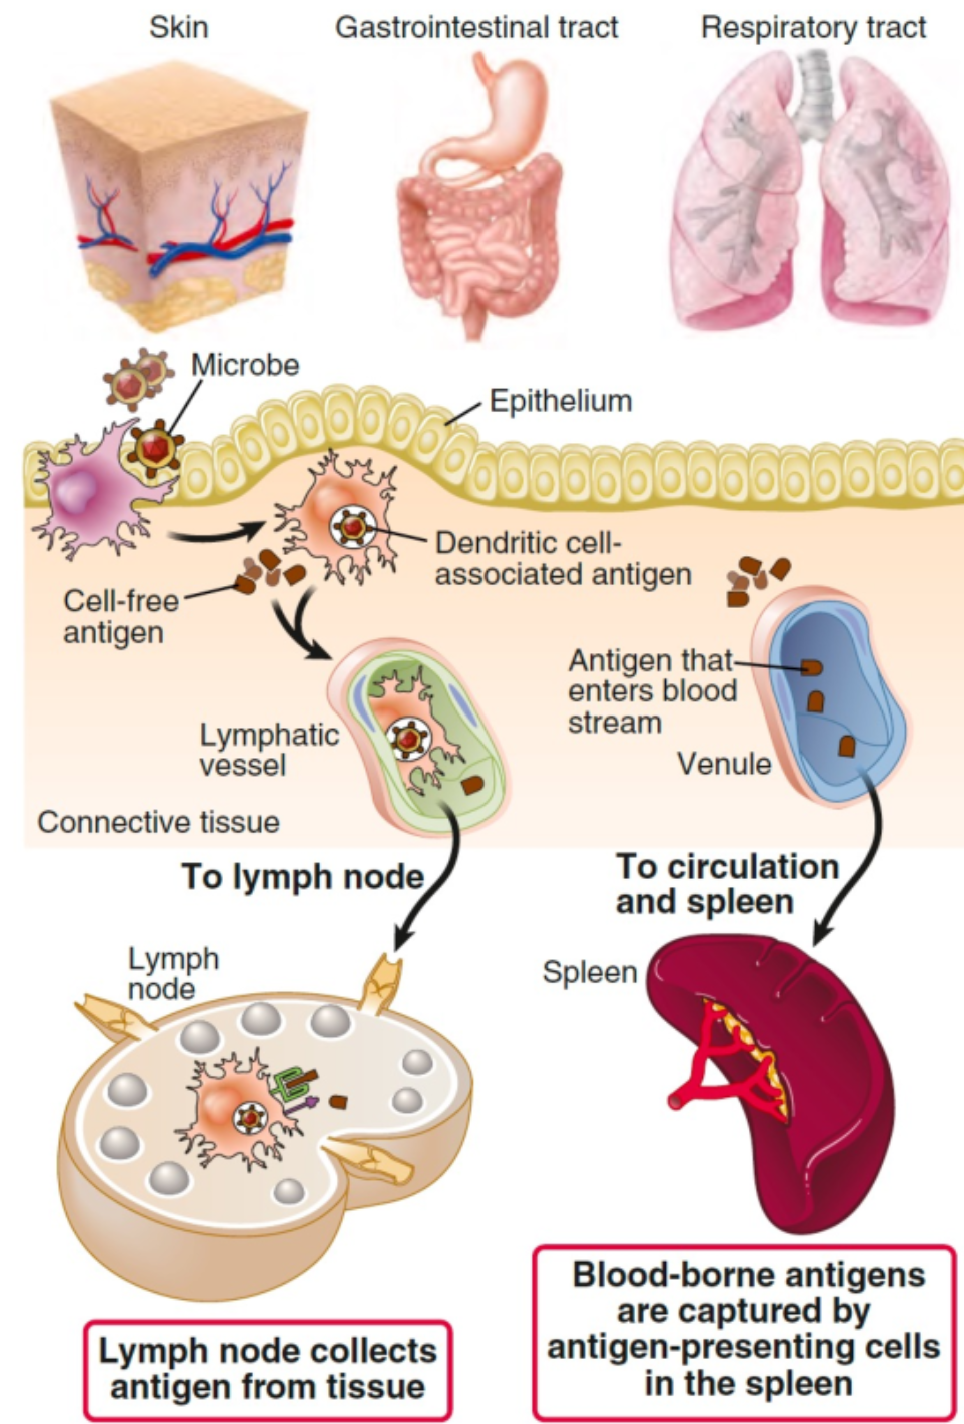
其中,树突状细胞 (DC, dendritic cell) 是一类具有极强抗原呈递功能的 APC 细胞,它的拿手好戏就是在皮肤、呼吸道等组织间游荡,摄取捕获抗原,并将其带回淋巴结,寻找对这类抗原有识别能力的 Naive T cell,并刺激它们启动应答。
- 在捕获抗原前,DC 只是一个无名小猝,即 未成熟 DC。
- 在捕获抗原后,DC 转变为 成熟 DC,迁移、呈递抗原能力增强,一路飞奔至淋巴结,激活 Naive T cell。
专事专办,员工通道——向淋巴结迁移
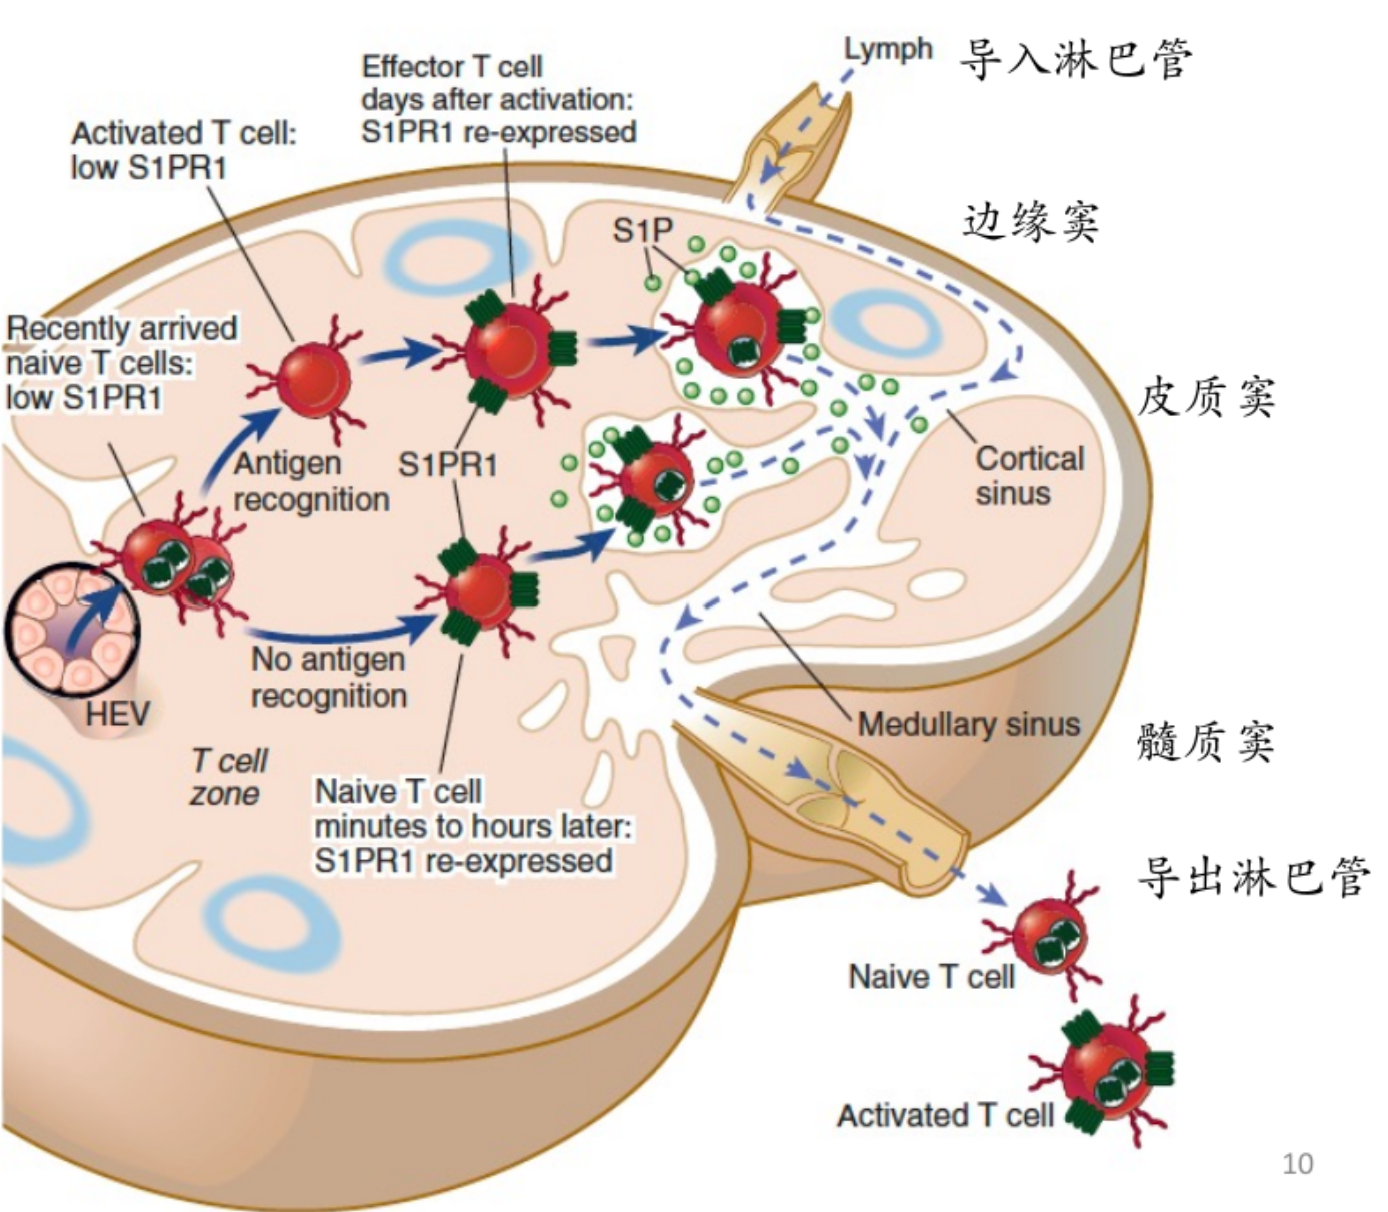
一个典型的淋巴结包含有如下 “进出通道”:
- 输入淋巴管:组织抗原、DC 细胞等的进入口
- 高内皮微静脉 HEV:Naive T cell 进入通道
- 输出淋巴管:淋巴细胞与淋巴液的离开通道
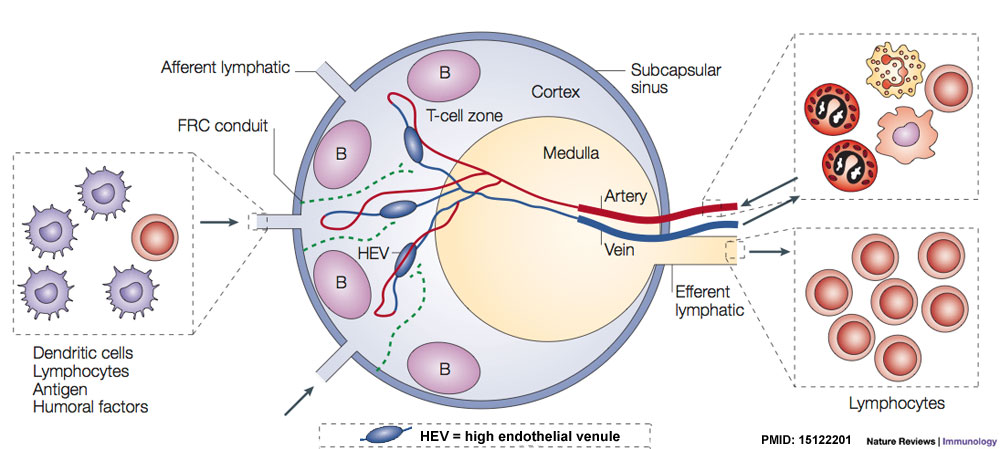
HEV 是一类内皮细胞 比较高耸 的静脉结构,它适合 Naive T cell 这种具备变形迁移能力的淋巴细胞穿过。
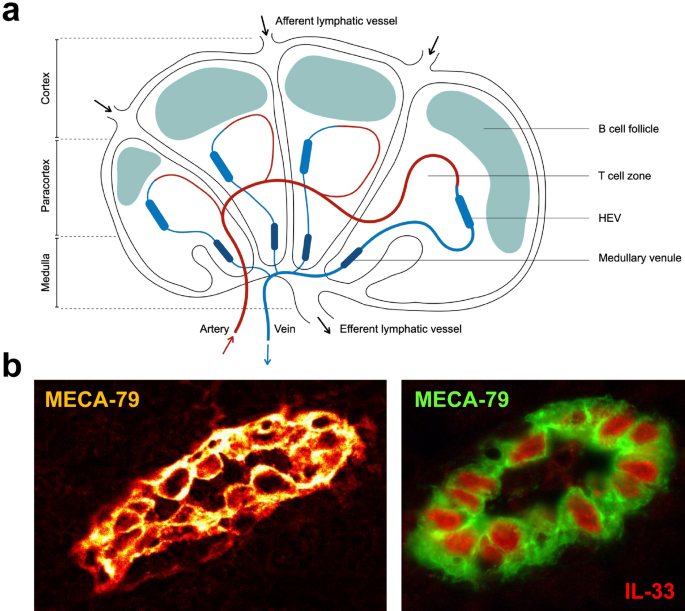
穿过 HEV 的 Naive T cell 会抵达淋巴结的 T 细胞区,在这里它会遇见携带抗原的 DC。
走还是不走,这是个问题
多日以后,走上免疫一线的效应 T 细胞一定会想起,它和好兄弟们刚来到一个淋巴结中,遇到那个携带着它等候一生的抗原的 DC 细胞的那个下午。 ——《百年免疫》
T 细胞们面对带着抗原呈递的 DC,一般有两种可能:
- 没有自己的特异性抗原:Naive T cell 检查 DC 所呈递的抗原,但并不能识别,因此也无法获得激活信号。它并不会在这里逗留太久,而是会离开淋巴结,再次进入血液循环,去到下一个淋巴结碰碰运气。
- 遇到了自己的特异性抗原:成功 DC 呈递的抗原的 T 细胞会获得激活信号,此时它会驻留在此淋巴结内,在数天时间内走完克隆扩增分化全过程,最终成为效应 T 细胞并离开淋巴结,发挥免疫功能。
但问题来了,T 细胞是如何知道自己何时进入淋巴结,又该何时离开?这就要请出 S1P/S1PR1 了。
S1P,即1-磷酸鞘氨醇,是表达于细胞外的脂质细胞分子,而 S1PR1 则是表达于 T 细胞表面的 S1P 受体。
- S1P 在血液与淋巴液中浓度较高,使得 S1RP1 内化。所以刚进入淋巴结的 T 细胞不会响应 S1P 信号。
- 如果没有激活信号,T 细胞会逐渐恢复 S1PR1 的表达,响应 S1P 梯度信号出淋巴结
- 响应激活信号的 T 细胞会暂时抑制 S1PR1,直到完成激活后重新上调 S1PR1 出淋巴结
走向诗和远方
完成活化的效应 T 细胞经淋巴结输出淋巴管回流血液,并在趋化因子的吸引下前往炎症发生或感染存在的战场,进行强而有力的免疫回击。
当然,并非所有的 T 细胞都需要走出淋巴结才能发挥效应,部分 Tfh 会留在淋巴器官内,并向滤泡方向迁移,帮助 B 细胞。
初始 T 细胞的激活与分化
Naive T cell 的激活需要三个信号:抗原识别、共刺激 和 细胞因子,只有三个信号通力合作,才能有效活化相应 T 细胞。
如此严格的调控也是避免免疫反应过度的关键举措。
第一信号,堪当先锋:抗原识别
抗原识别是激活 T 细胞的最关键的第一信号,DC 细胞所呈递的抗原嵌在 MHC I/II 内,而 T 细胞识别的是 抗原肽-MHC 复合物。
- CD4⁺ T 细胞识别 MHC II 呈递的抗原肽。
- CD8⁺ T 细胞识别 MHC I 呈递的抗原肽。
CD4/8 辅助 TCR 完成识别与信号传递,真正的信号传递则由与 TCR 相结合的 CD3 完成。
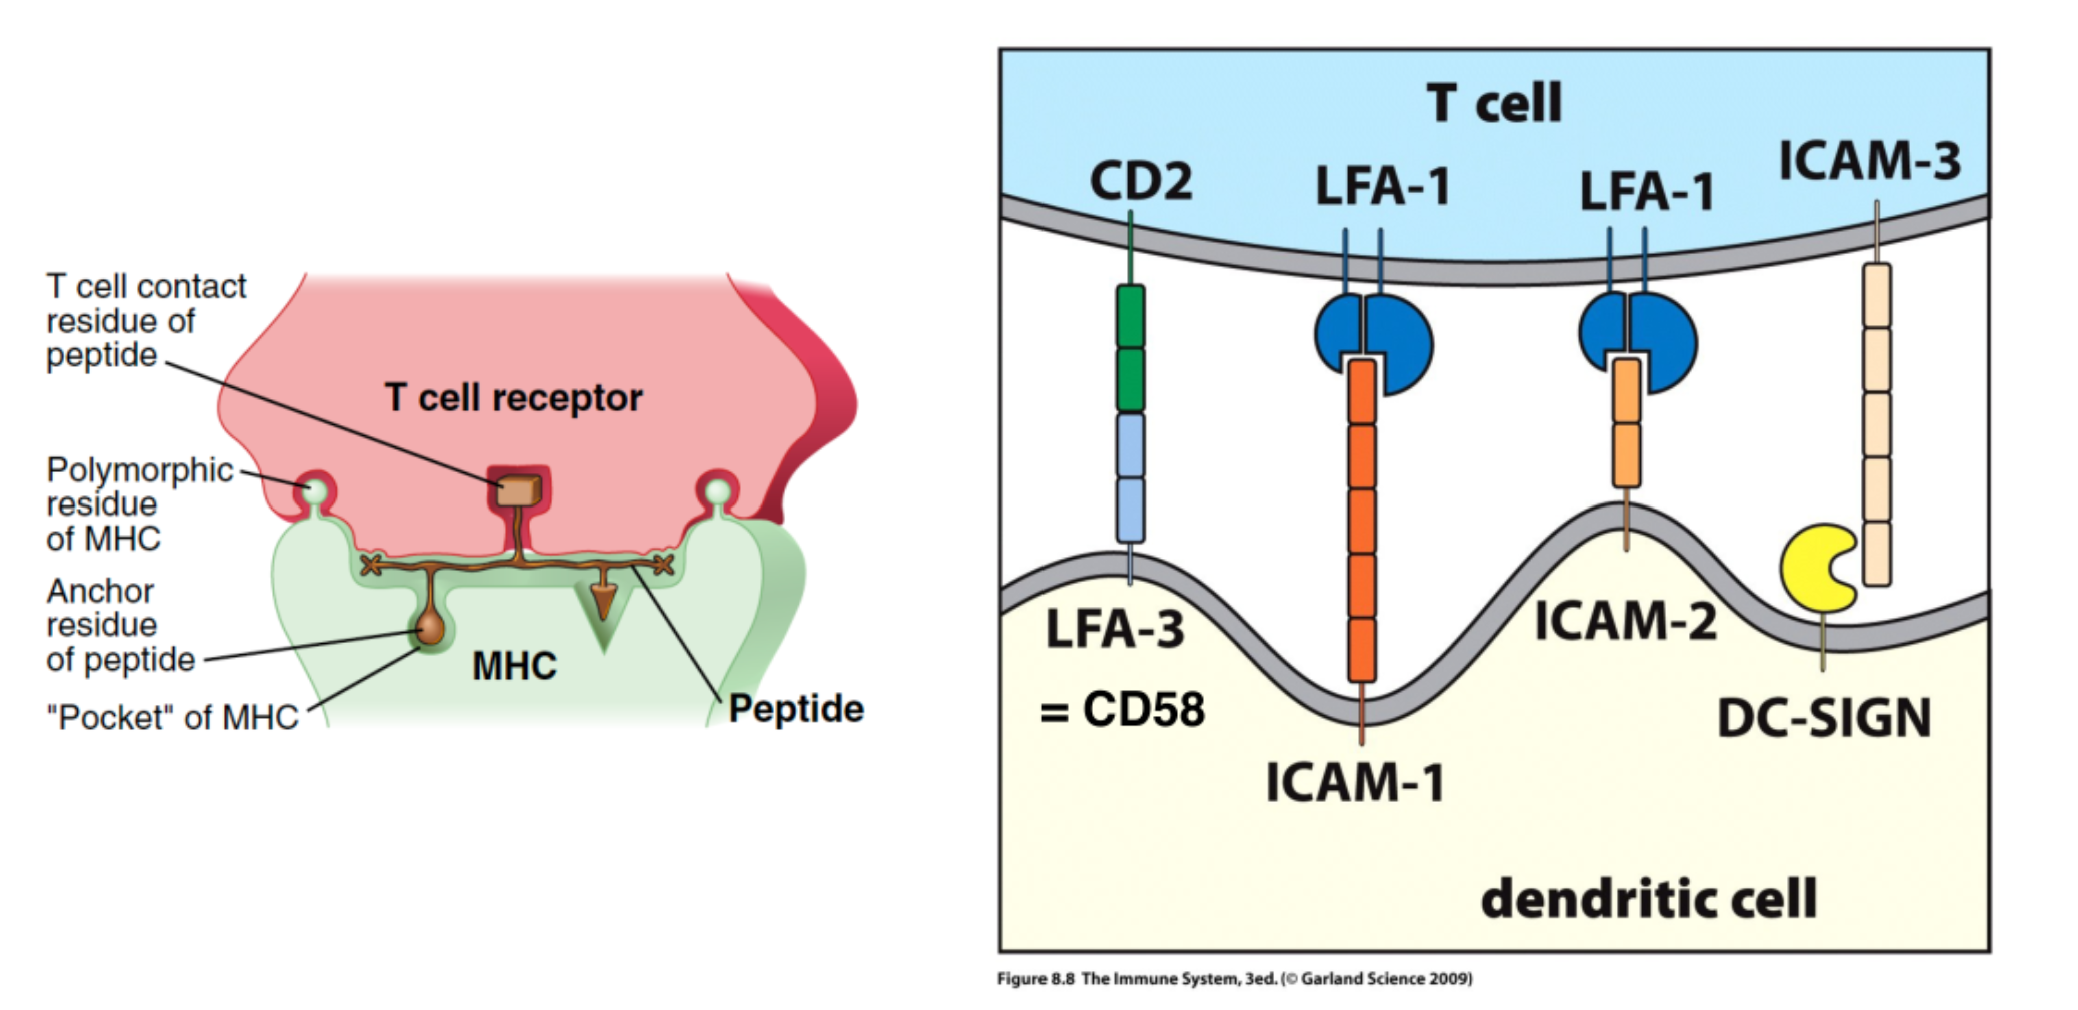
除开 TCR-MHC 之间的识别过程,T 细胞还会通过 黏附分子 与 DC 细胞上分子作用,它们会 加固两个细胞之间的接触作用。
第二信号,趁热打铁:共刺激分子
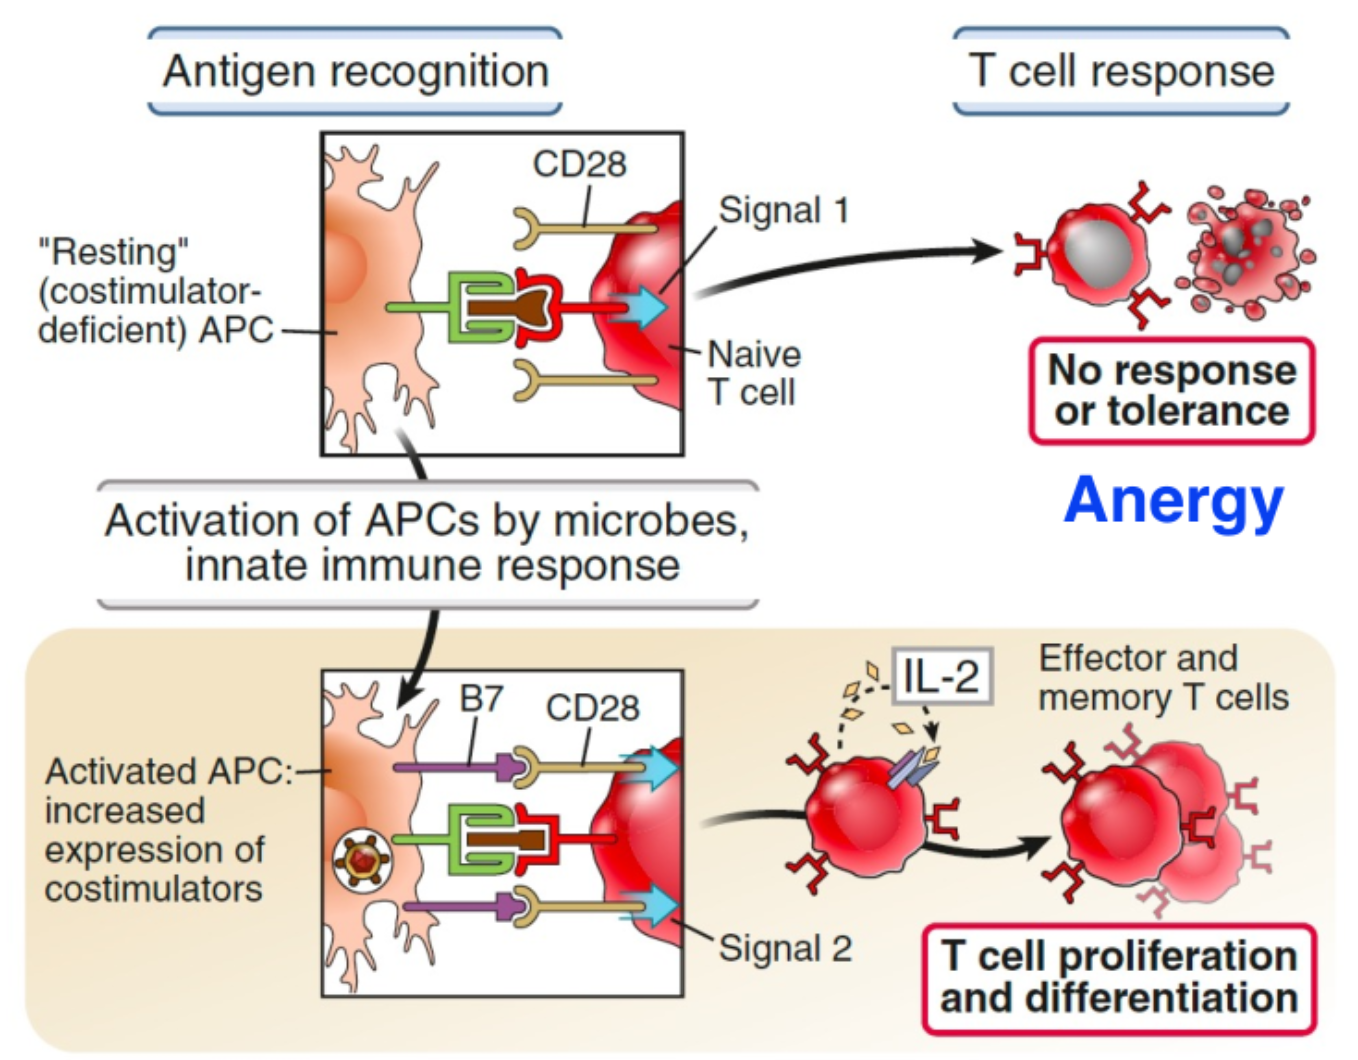
当然,如果只存在第一信号,T 细胞并不能有效活化,反而,其会走向完全相反的 anergy,无反应状态 的耐受命运。
某种意义上来说,这是免疫系统在进化中特地留下的
if-else分歧点,实现一套系统引导两种结局。
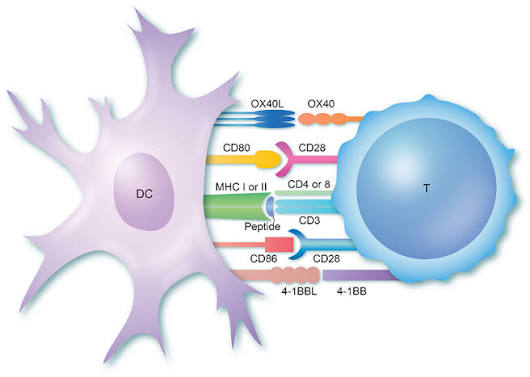
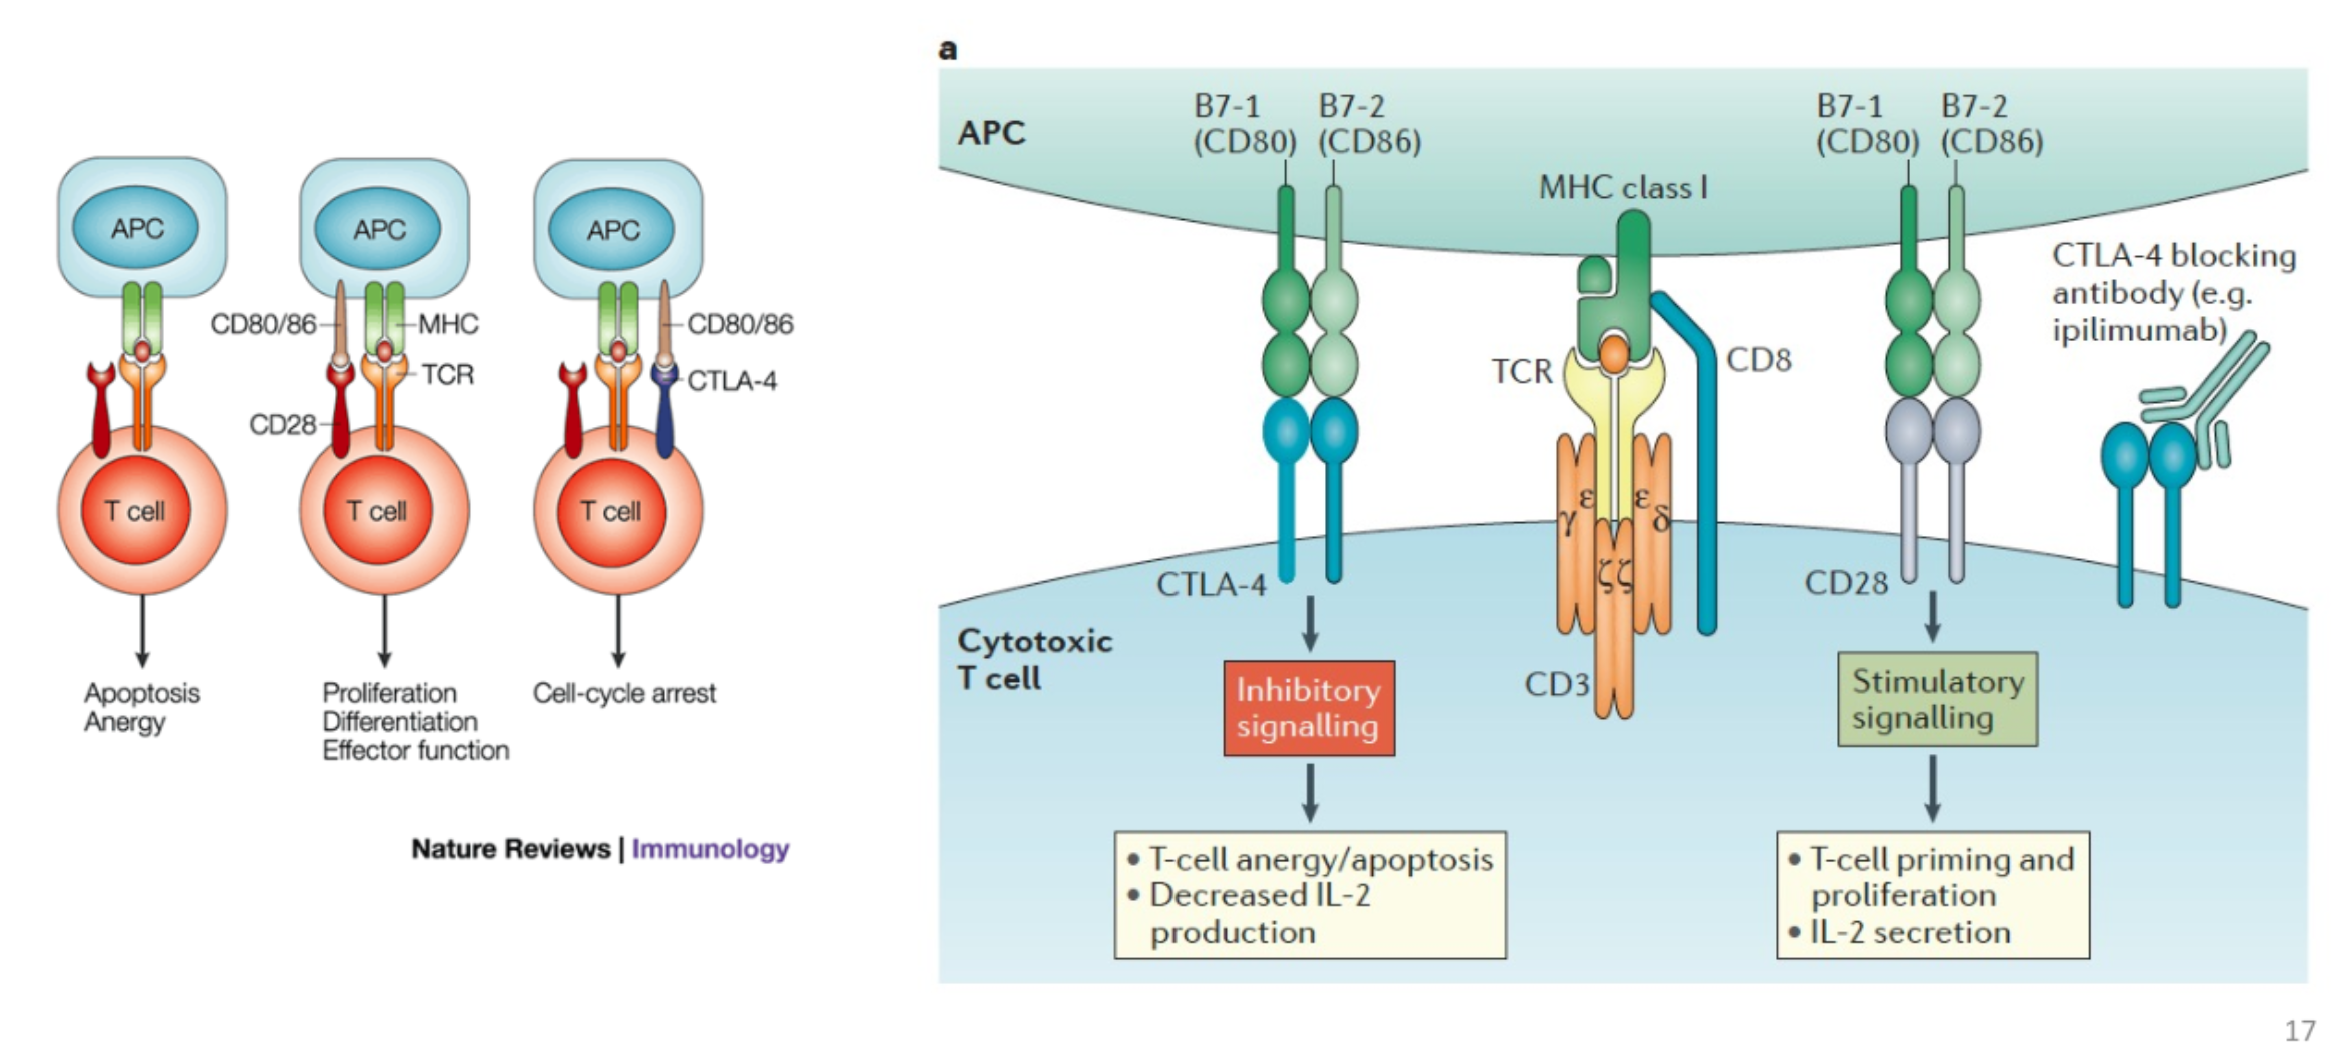
在真正的,由微生物引发的 先天免疫反应 中,APC 会得到充分的活化,与此同时,其膜表面的共刺激分子:CD80(B7-1)、CD86(B7-2) 表达上调。
与 APC 结合的 T 细胞在识别 抗原肽-MHC 复合物时候,还会通过 CD28 与共刺激分子 CD80/86 结合,接受共刺激信号。CD28 一路通过 PI3K–Akt、RAS–MAPK 下游通路传递信号。
- 增加抗凋亡蛋白,促进细胞存活。
- 增加 IL-2 和 IL-2 受体表达,促进增殖。
- 推动细胞周期,并支持后续分化。
T 细胞膜表面还会有 CLTA-4、CD152 这样的抑制型共刺激分子受体,它们会与 CD28 竞争配体,并抑制 T 细胞激活。
一般来说,常规 T 细胞激活后会上调 CTLA-4,形成负反馈调节;Treg 也表达 CTLA-4。
第三信号,一锤定音:细胞因子
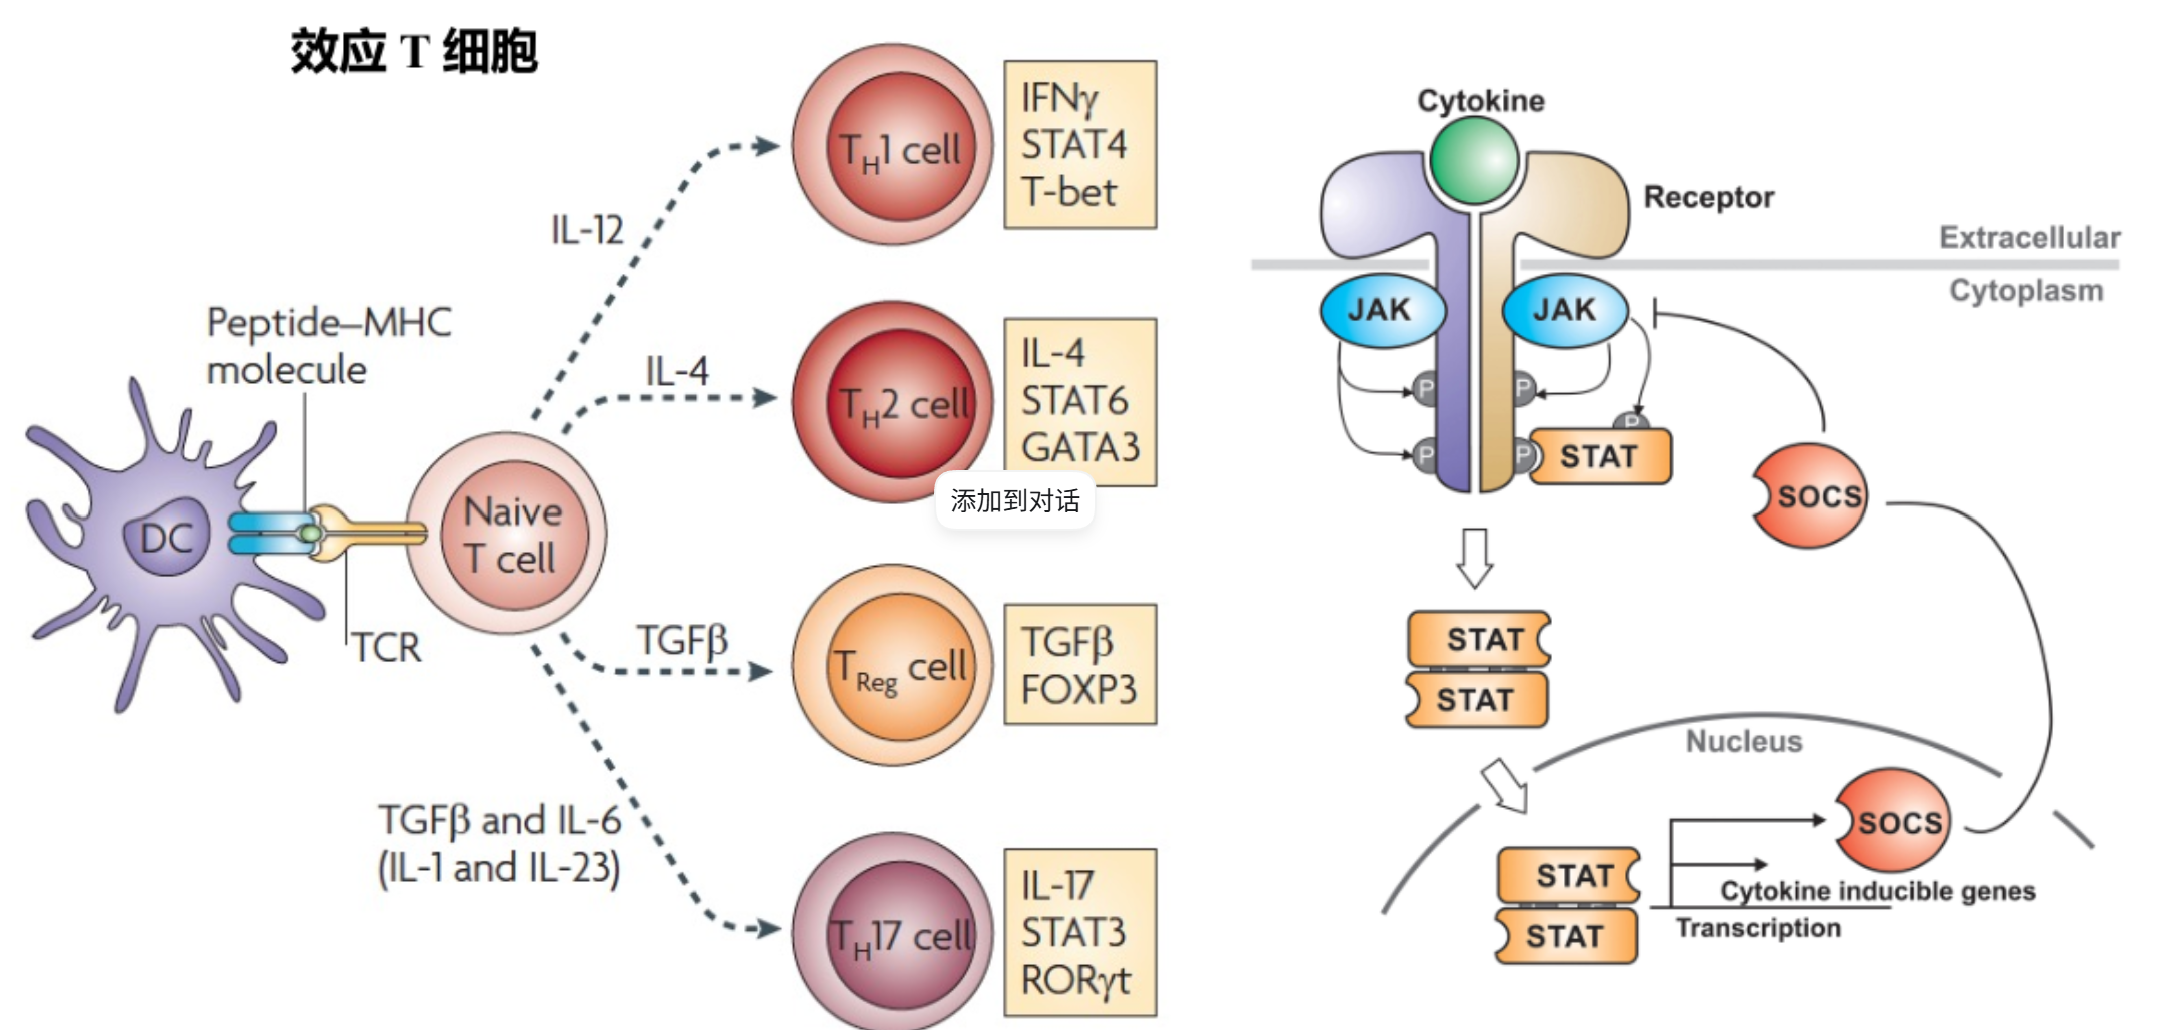
即使是同样的 CD4⁺ T 细胞,走过同样的第一、第二信号激活过程,其在第三信号——细胞因子的诱导下,也会走向不同的细胞分化命运。
- IL-12 促进 Th1 分化。
- IL-4 促进 Th2 分化。
- TGF-β 与炎症性细胞因子的组合可促进 Th17 分化。
- TGF-β 与 IL-2 等信号配合可支持外周诱导性 Treg 分化。
在不同的细胞因子组合下,T 细胞会分化为不同的,具备具体职责功能的 T 细胞。细胞因子信号一般通过 JAK-STAT 信号通路影响核内基因转录。
T 细胞:我已启动!!!
被激活的 T 细胞会迅速分泌多种细胞因子,参与维持增殖存活(IL-2、CD25、IL-2Rα),淋巴结驻留,协助 B 细胞等发挥功能,限制 T 细胞过度应答等。
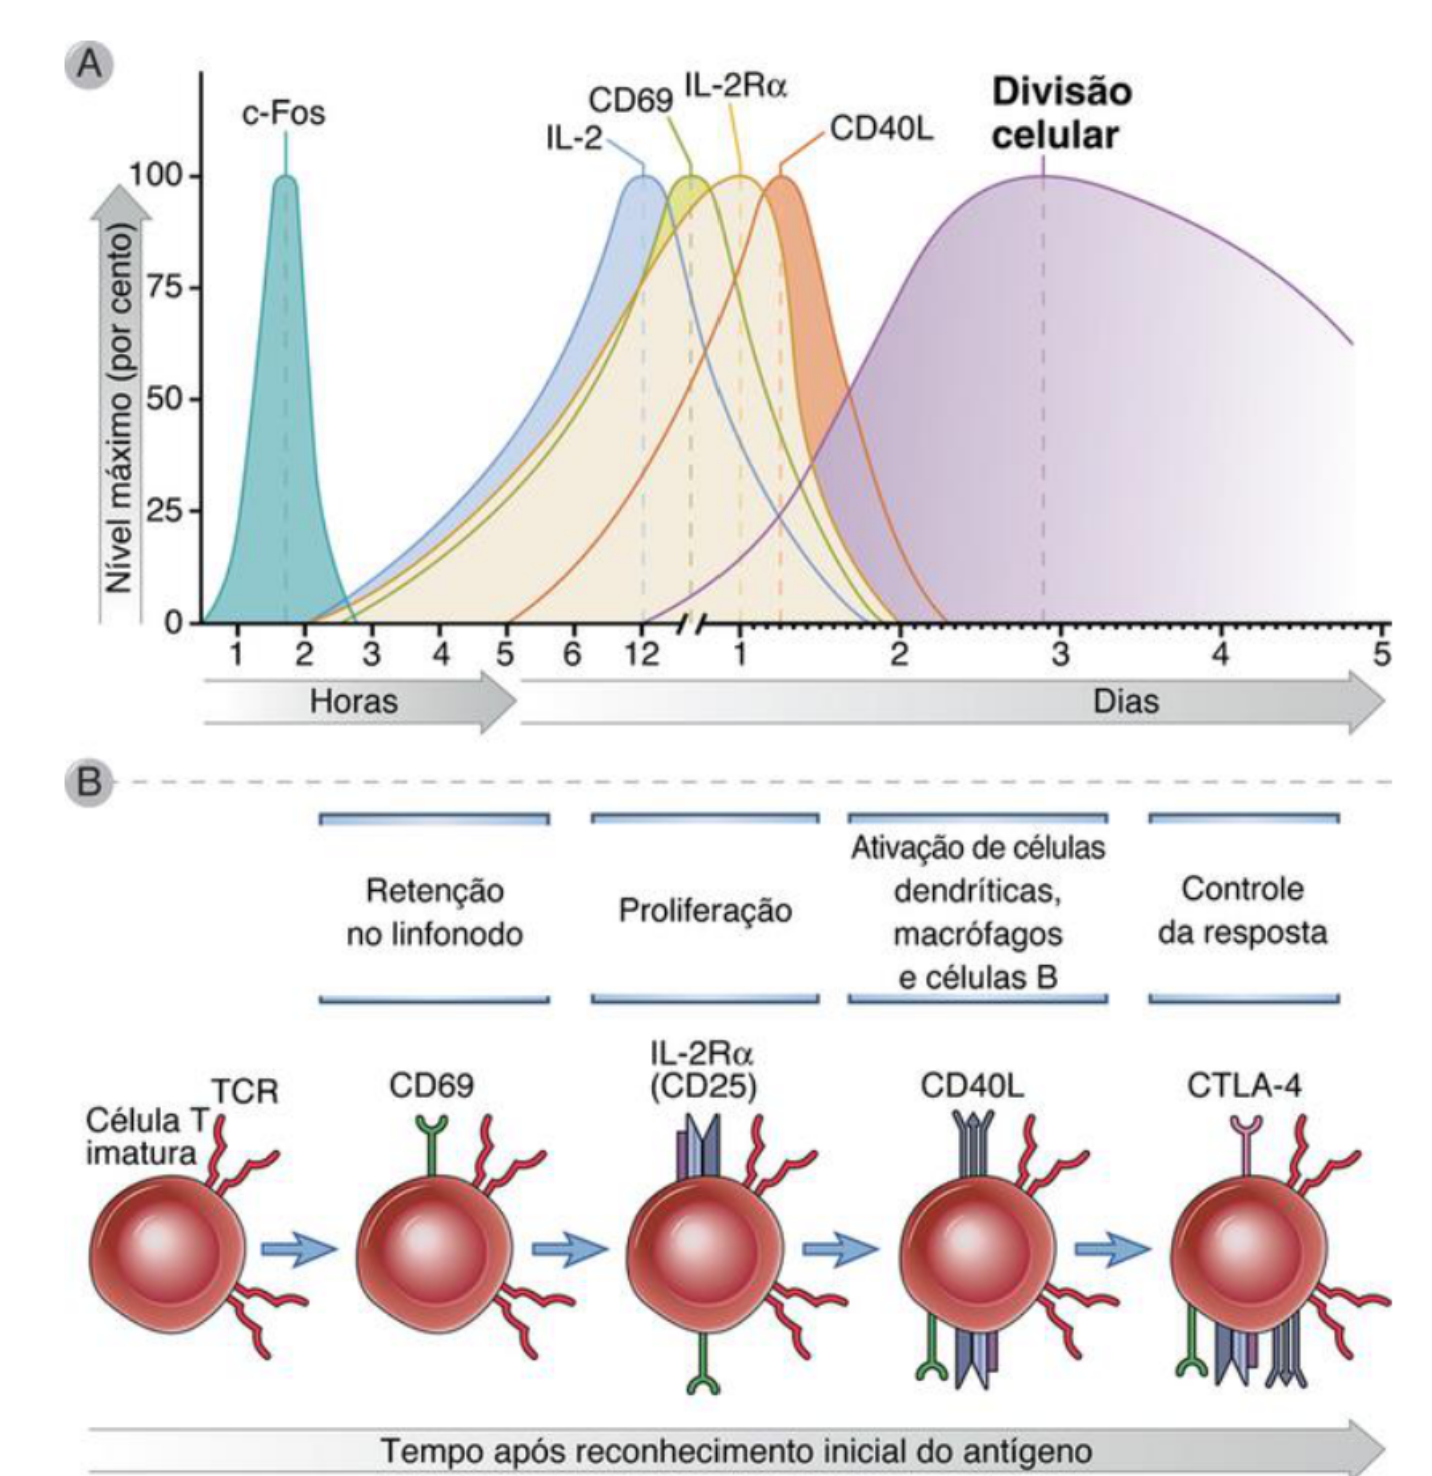
之后,T 细胞会在相应信号的刺激引导下完成 克隆增殖(特定的细胞亚群占比会迅速飙升),在达到一定数量后分化进程会大规模发生:
- CD4⁺ 效应 T 细胞获得帮助其他细胞、调节免疫的功能。
- CD8⁺ 效应 T 细胞获得杀伤感染细胞等功能。
- 一部分细胞形成记忆细胞,为再次应答保留能力。
严谨一点
受限于我们讲故事的方式,我只能顺序地,以功能上的不同来分别向你介绍激活 Naive T cell 的三个信号,并在之后向你介绍 T 细胞的克隆分化过程。
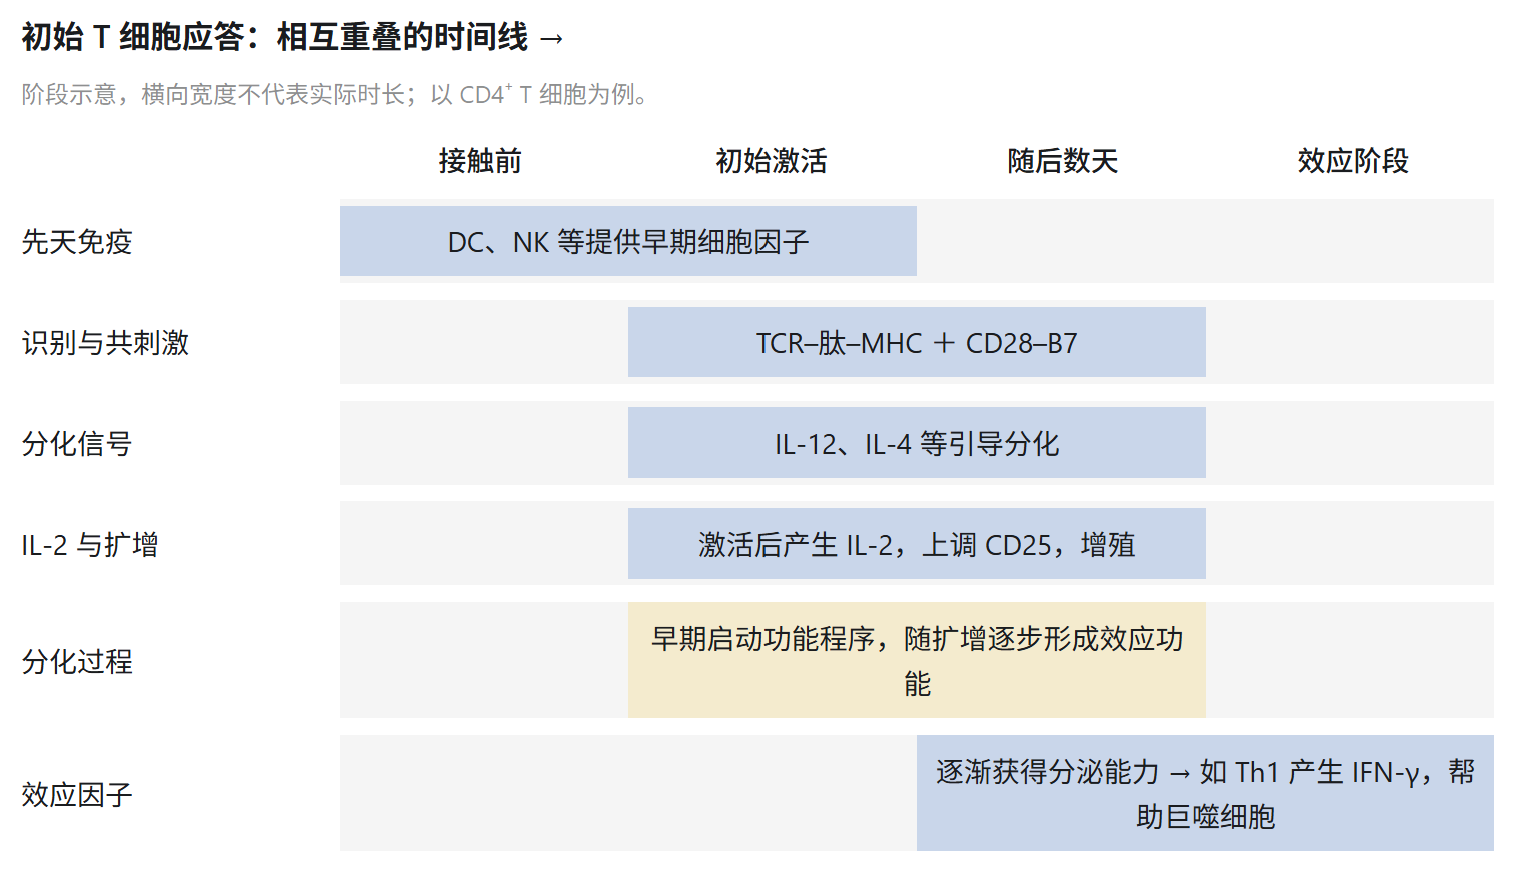
但是实际上,这几个部分是相互交叉发生的,在时间线上,各个过程都会与其他过程有所重叠。
例如虽然细胞因子是第三信号,但它早在 Naive T cell 被激活前就存在于淋巴结的环境内了(巨噬细胞等分泌),而克隆与分化的过程在 T 细胞被激活之后就会开始发生,克隆中的 T 细胞逐渐被引导为相应的分化亚群。
ChatGPT 绘制了一个不是很严谨的时间线图,仅供参考:
分化命运:以 CD4⁺ T 细胞为例
CD4⁺ T 细胞主要会分化为具有协助职责、调节免疫反应过程的辅助性 T 细胞。而区分不同亚群的方法,就是看每个 T 细胞所分泌的细胞因子类型组合——这些与它们所表达转录因子类型息息相关。
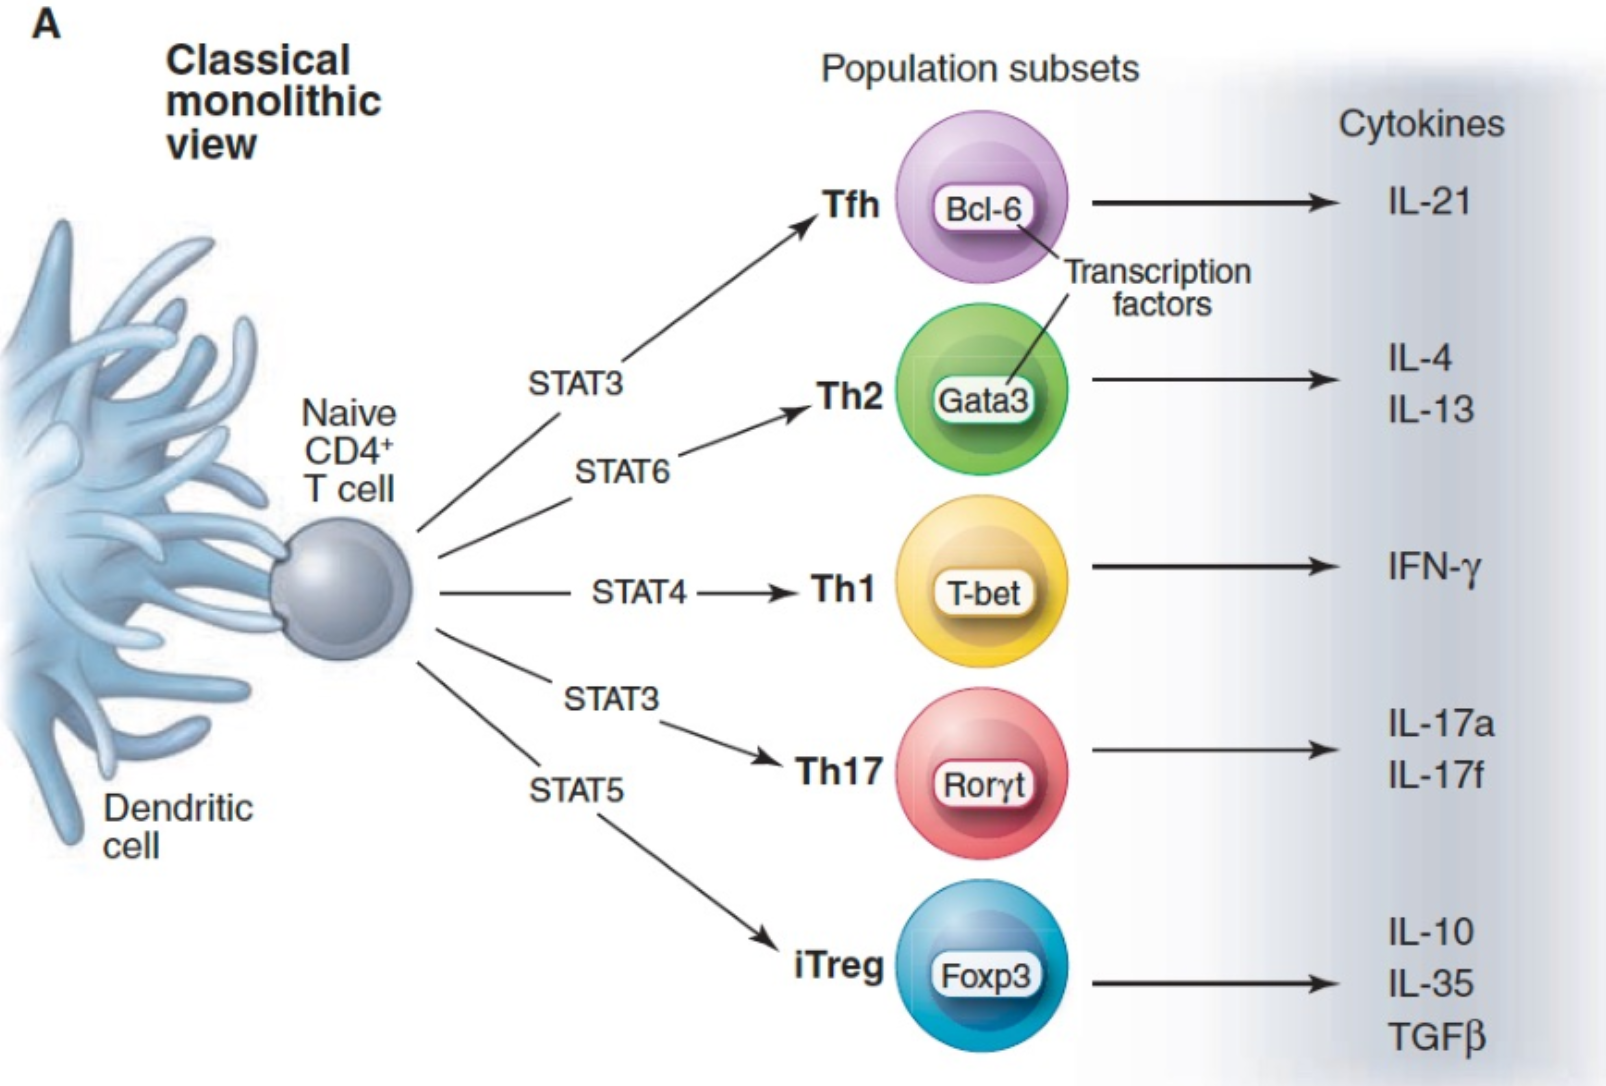
当然,在真实的体内免疫过程中,各个细胞亚群并不会如上表划分如此泾渭分明,部分辅助性 T 细胞能同时表达多种关键转录因子,产生多种细胞因子分泌组合,因此会携带其他亚群的部分特征。
CD8⁺ T 细胞
同样的,CD8⁺ T 细胞也有相应的多分化命运:
- 效应细胞:执行细胞杀伤
- 记忆细胞:长期留存的,可以进行快速响应的 T 细胞
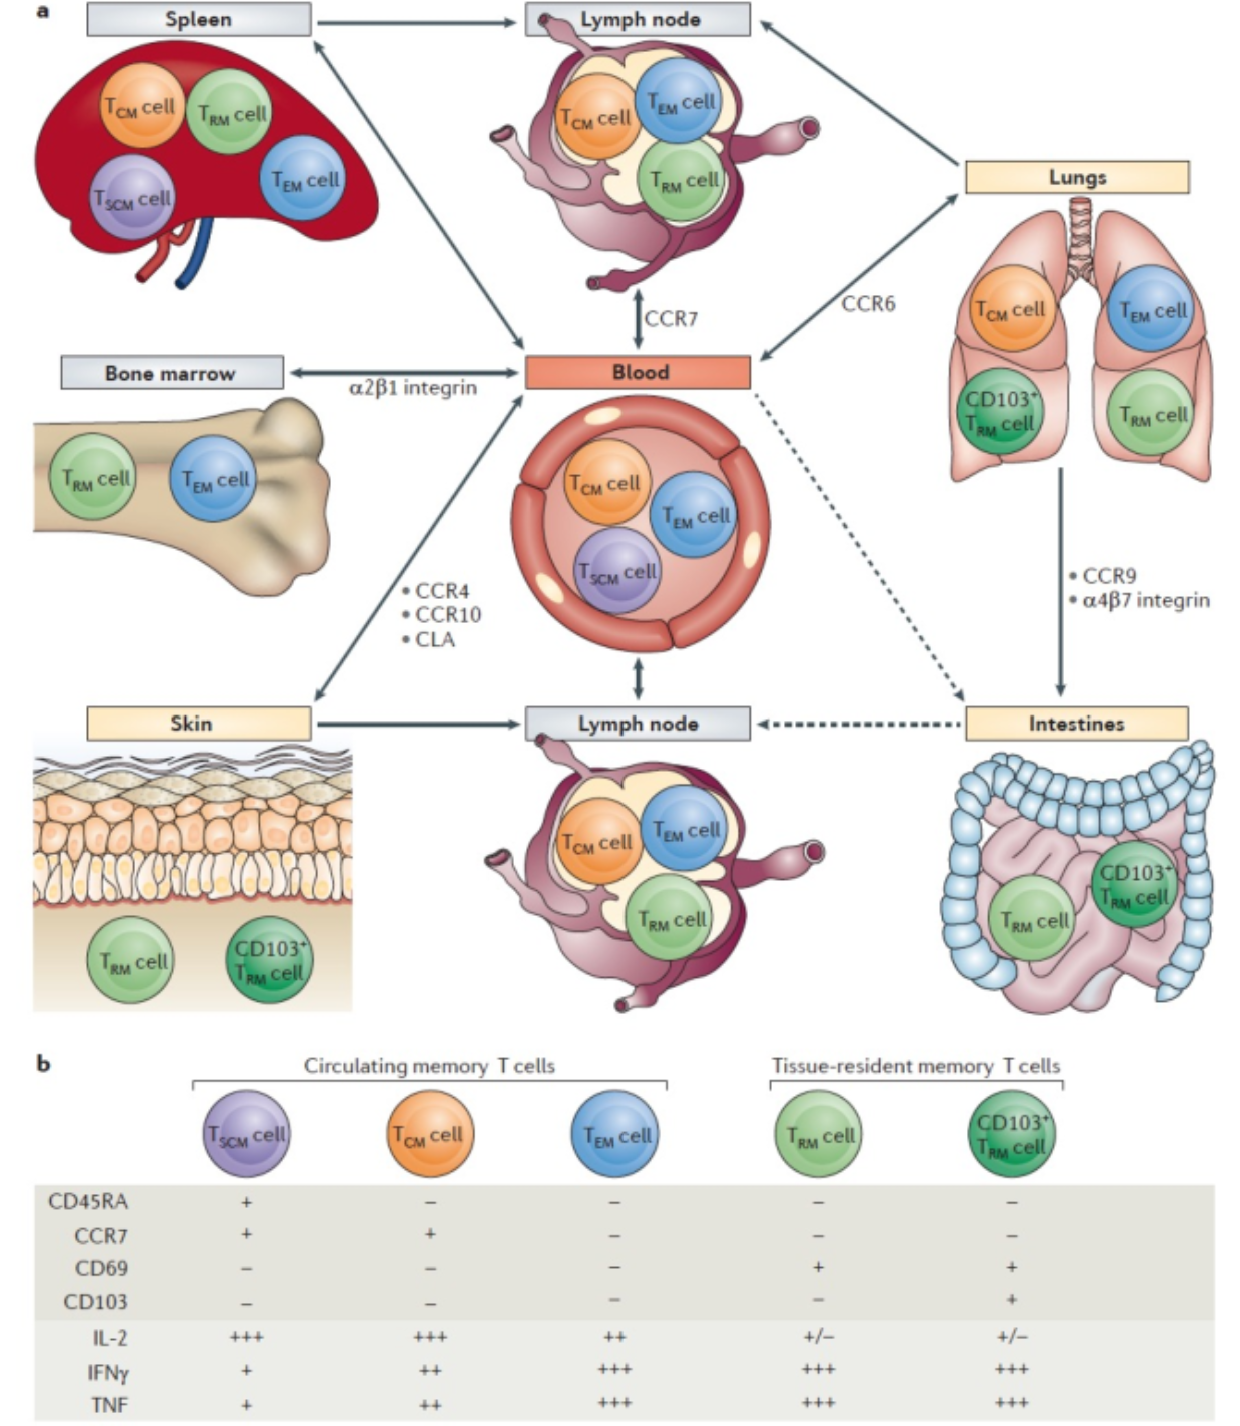
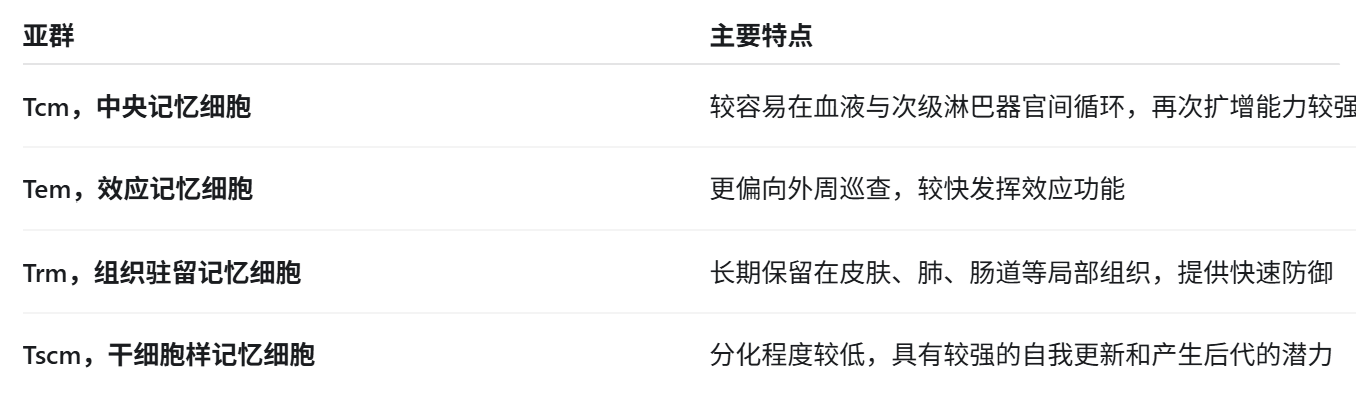
- 中央记忆 T 细胞,Tcm:主要在血液和次级淋巴器官间循环,再次扩增能力较强。
- 效应记忆 T 细胞,Tem:更容易巡查外周部位,并较快发挥效应功能。
- 组织驻留记忆 T 细胞,Trm:长期保留在组织局部。
- 耗竭细胞:在持续特定刺激下形成的异常功能变化的 T 细胞
CD4+ T 细胞介导的免疫过程
在本小节,我们会重点了解四种 CD4+ T 细胞:Th1、Th2、Th17 和 Tfh。
每一个细胞,我们都会强调:
- 什么刺激促进分化 → 哪些转录因子参与 → 分泌什么细胞因子 → 作用于哪些细胞 → 产生什么结果。
Th1:巨噬细胞啦啦队,增强杀菌能力
- 引导 Th1 分化的 IL-12 与 IFN-γ 分别来自于 DC、巨噬细胞 与 NK 细胞等对胞内细菌与病毒的先天免疫细胞应答。同抗原刺激、共刺激信号一同引导 CD4⁺ T 细胞分化为 Th1。
- IFN-γ 通过 STAT1 促进 T-bet 表达
- IL-12 通过 STAT4 促进分化
- 活化的 Th1 进一步分泌 IFN-γ,形成正反馈放大信号
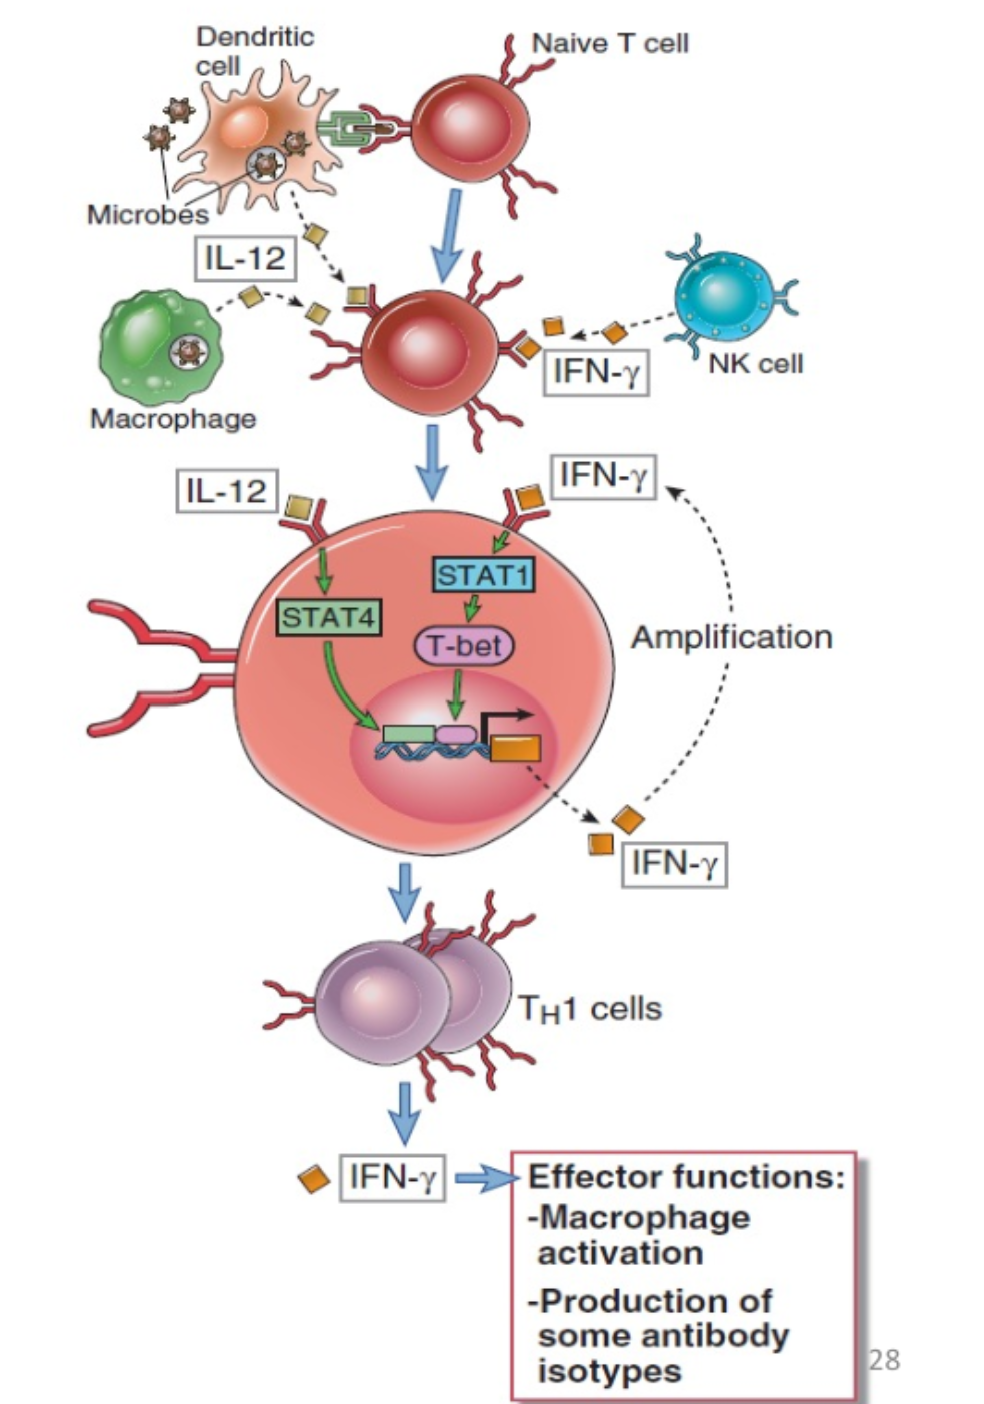
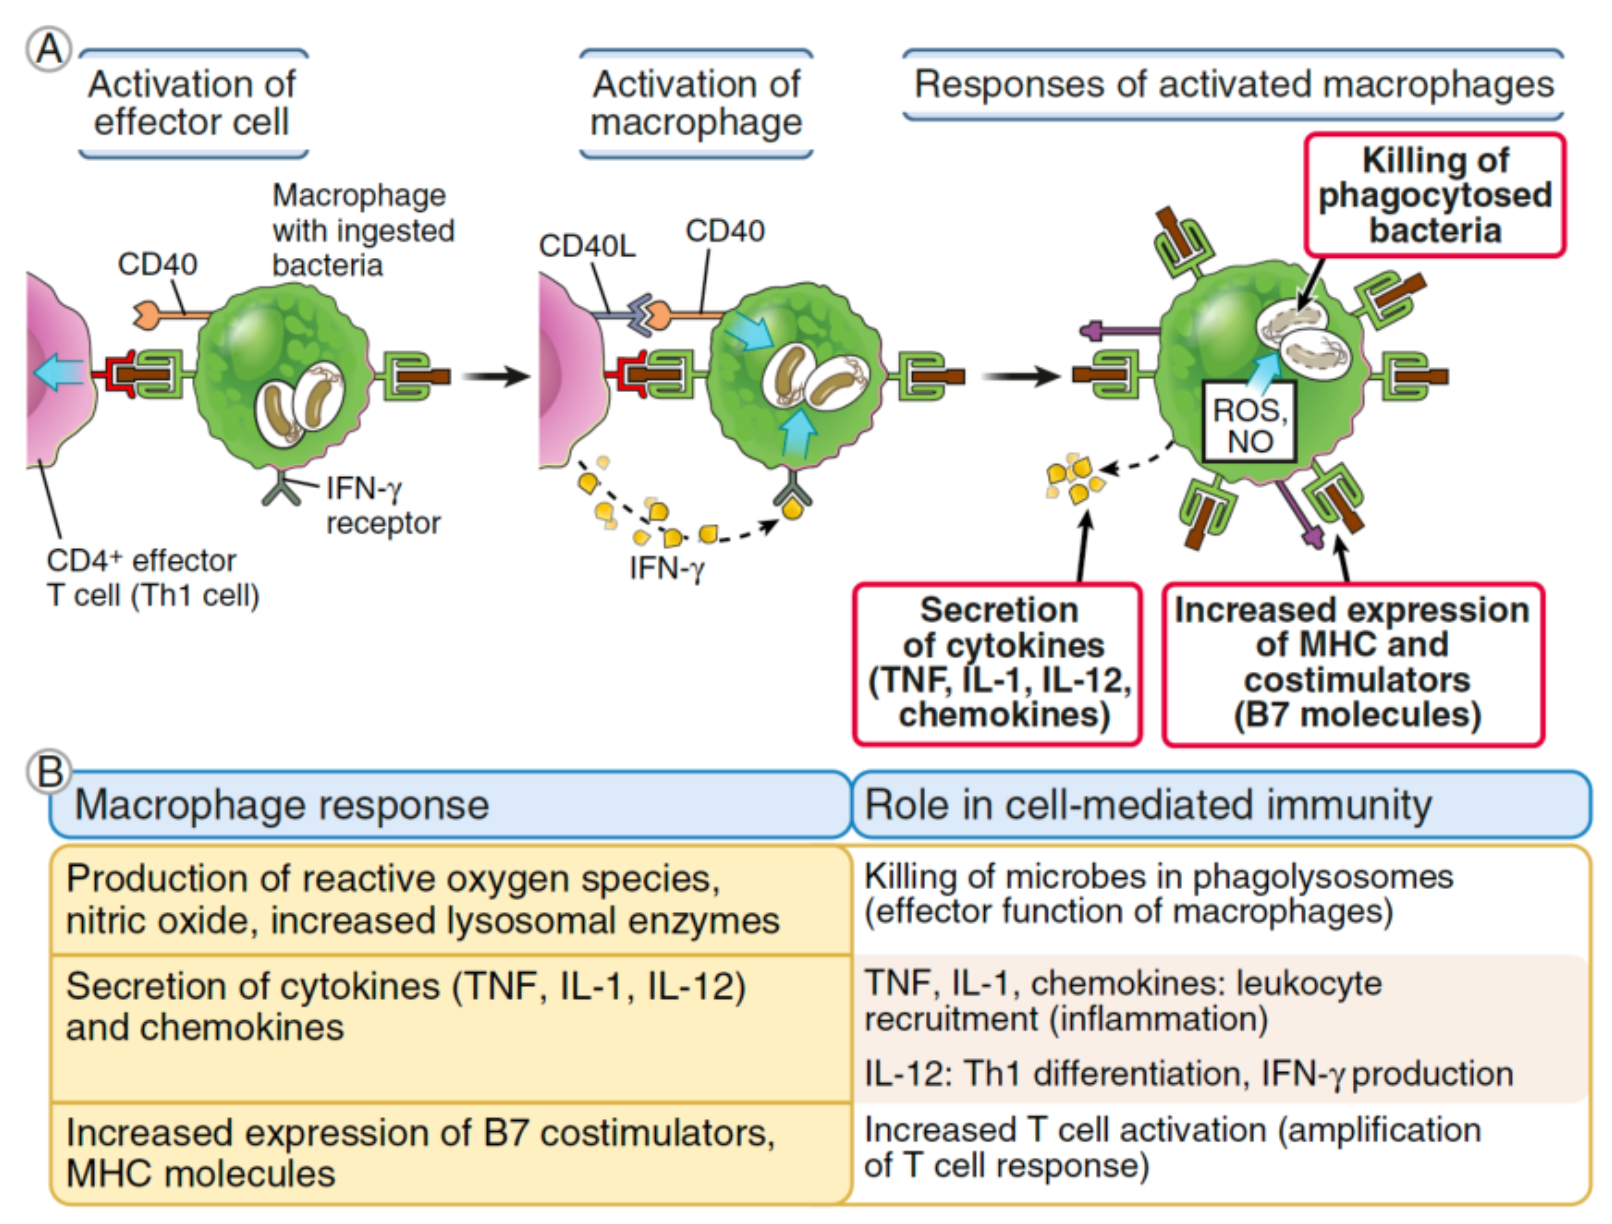
活化的 Th1 的核心任务是通过分泌 IFN-γ 活化巨噬细胞 (M1),提高其杀菌与免疫调节能力。
- 巨噬细胞呈递抗原:吞入微生物的巨噬细胞,将相应抗原肽通过 MHC Ⅱ 展示给效应 Th1 细胞。Th1 的 TCR 识别后,启动针对这个巨噬细胞的帮助。
- Th1 提供两类激活信号:
- 分泌 IFN-γ,作用于巨噬细胞上的 IFN-γ 受体。
- 表面 CD40L 结合巨噬细胞上的 CD40,提供细胞接触依赖的信号。
- 巨噬细胞增强杀菌和免疫调节能力:被打了鸡血的巨噬细胞会增强 ROS、NO 和溶酶体依赖杀菌途径;TNF、IL-1 和趋化因子分泌增强,促进炎症进程和白细胞募集等等。
IFN-γ
总结来说,IFN-γ 具有如下四类功能:
- 激活巨噬细胞,增强胞内杀菌能力
- 强化 Th1 分化,并在相应条件下抑制 Th2/Th17 分化
- 提高 APC 的 MHC、抗原加工和共刺激分子表达
- 参与抗肿瘤作用,并促进某些 IgG 亚类的类别转换
IFN-γ 的产生可受到 IL-12 和 IL-18 的增强。
Th2:打的就是精英!对抗蠕虫,参与过敏和组织修复
- IL-4 通过 STAT6 同抗原刺激一起促进 Th2 的分化开始,激活 GATA-3 的表达,并最终推动 Th2 分化。
- GATA-3 是关键转录因子,其表达促进了 IL-4、IL-5 和 IL-13 的表达。形成了正反馈循环。
- GATA-3 抑制 Th1 的分化。
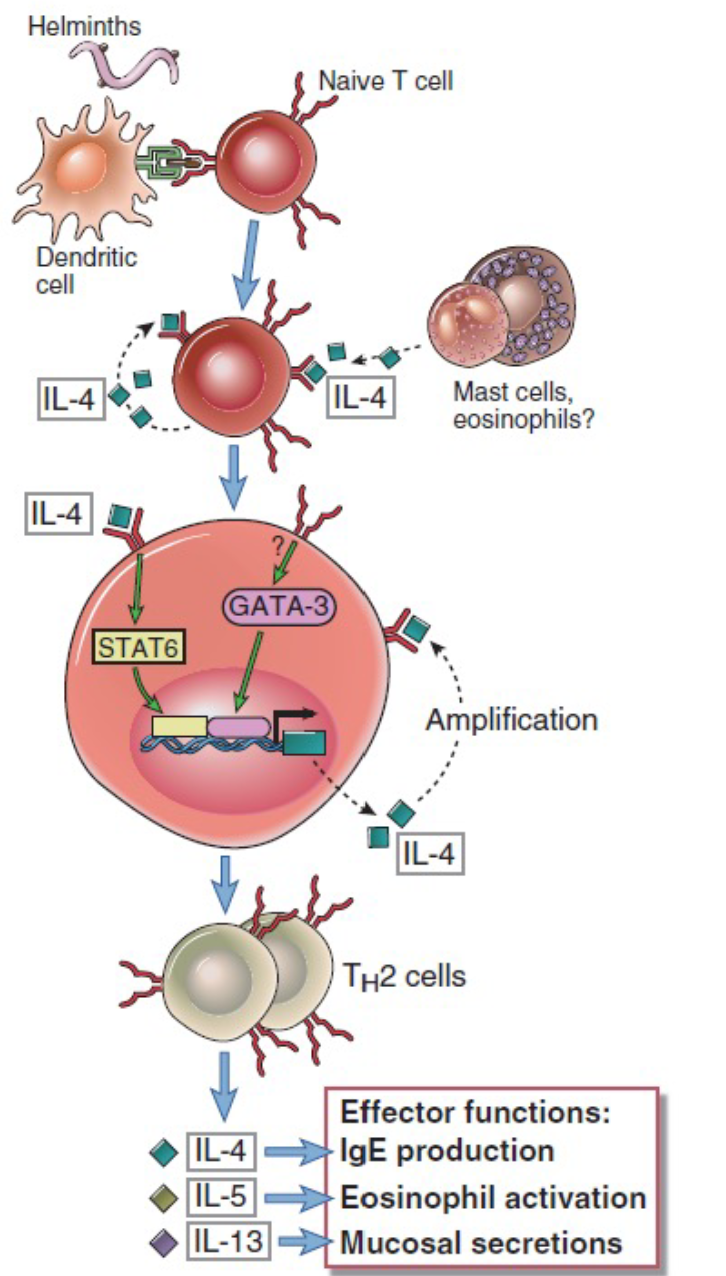
蠕虫体积较大,是比较棘手的目标,Th2 在此过程中会调动包括嗜酸性粒细胞、肥大细胞、抗体以及黏膜等多方力量进行免疫防御。
其中,IL4、IL-5、IL-13 共同发挥作用:
- 促进 B细胞向 IgE 类别转变 —— IL4
- 促进嗜酸性粒细胞生长分化和活化 —— IL5
- 促进黏液分泌与排出过程 —— IL4、IL13
- 旁路巨噬细胞 (M2) 活化,促进组织修复过程 —— IL4、IL13
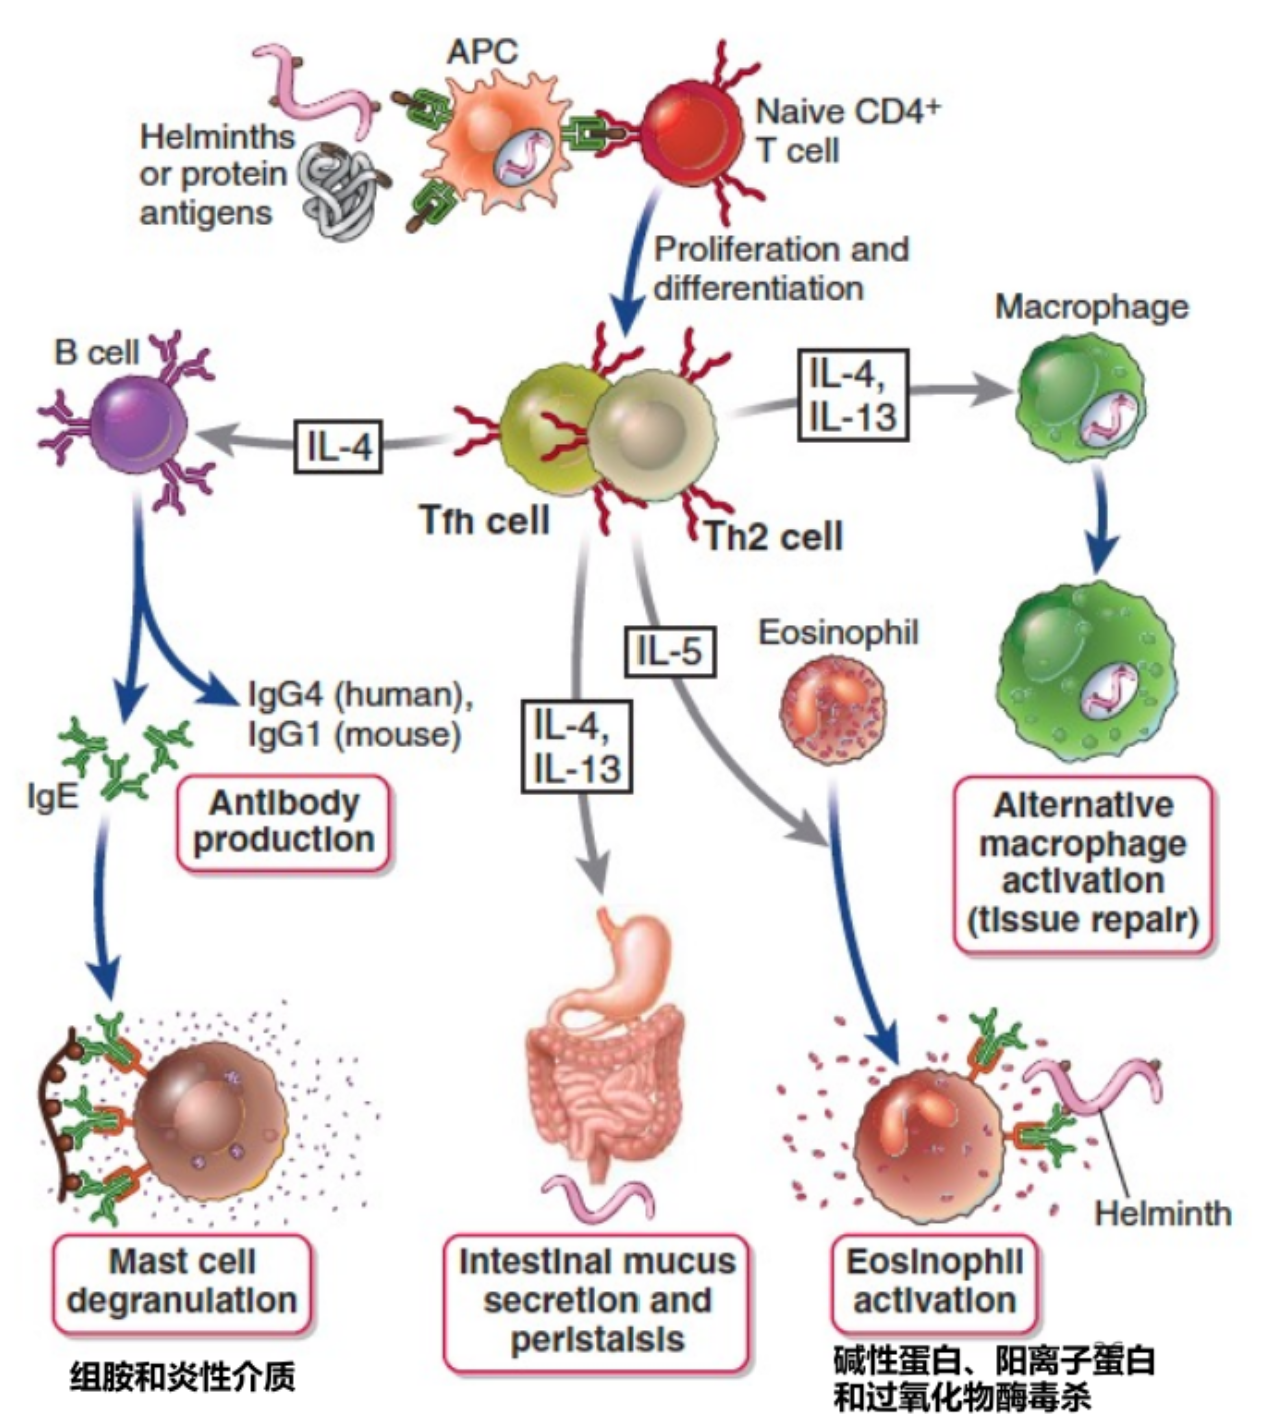
在此过程中,B 细胞产生的 IgE 会与肥大细胞表面的 FcεRI 结合,当抗原引发 IgE 交联时,就会触发肥大细胞活化与脱颗粒,释放组胺等介质。这也是过敏反应的基本原理。
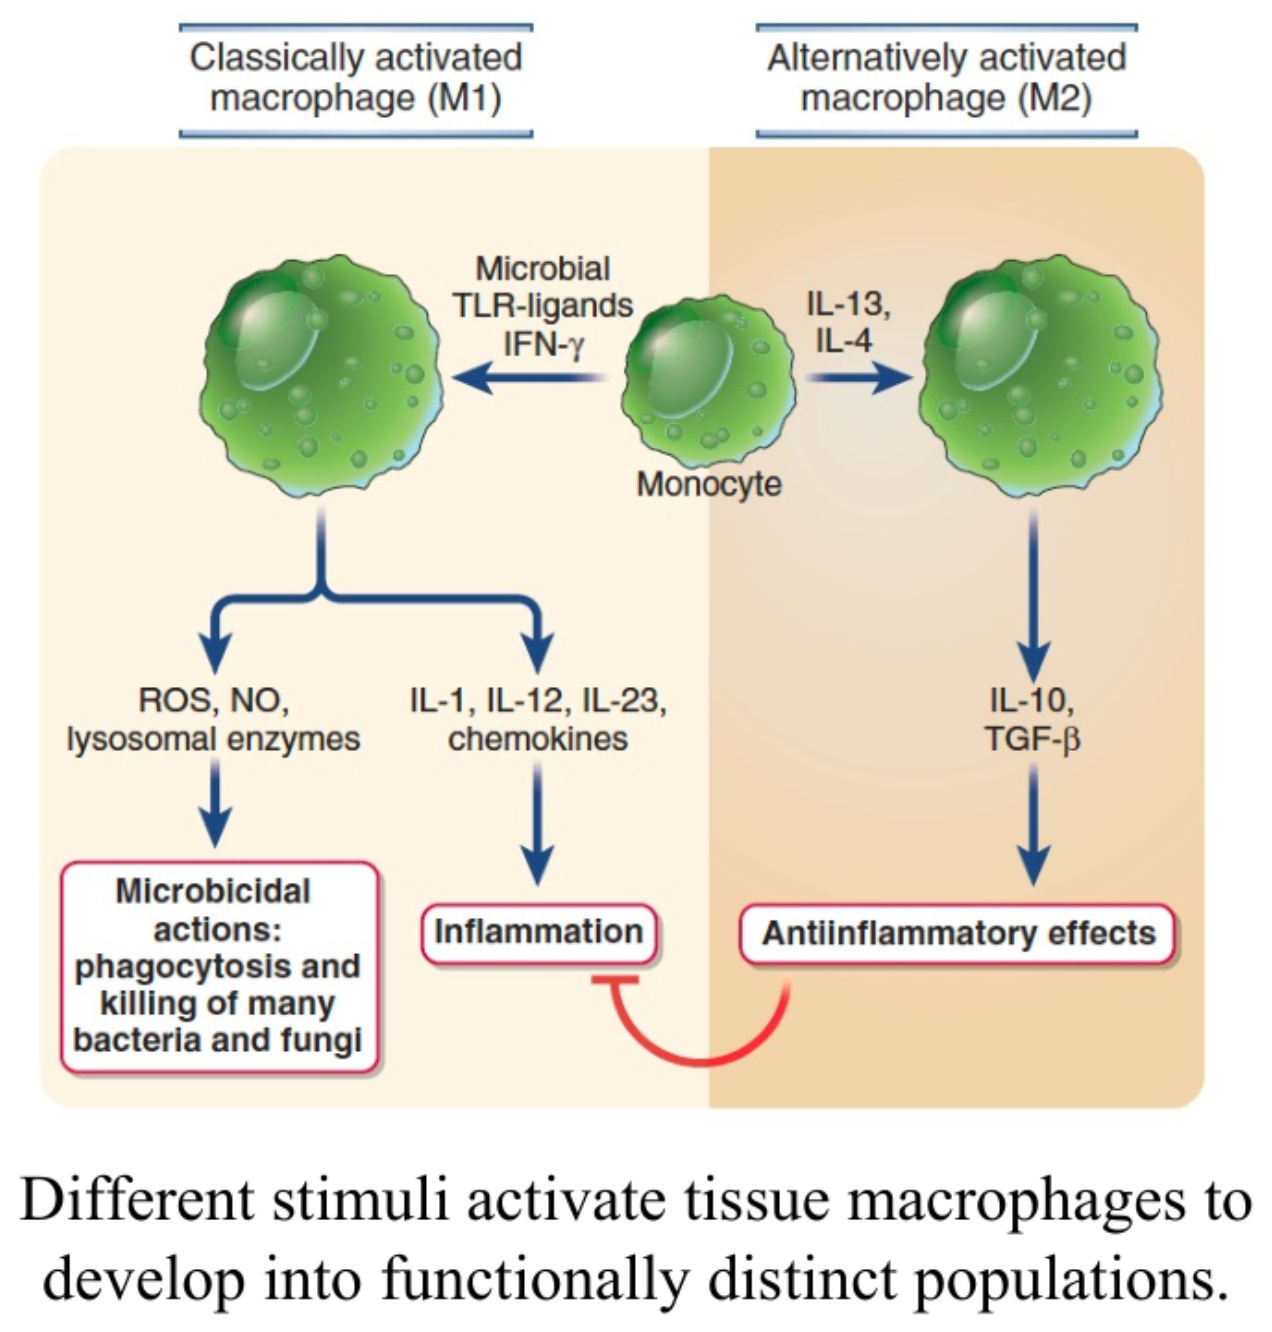
Note
前后一共出现了两种巨噬细胞活化类型:
- IFN-γ 经典活化 M1:杀伤作用,促炎
- IL-4、IL-13 旁路活化 M2:组织修复、消炎、纤维化
Th17:边疆大吏,庇佑黏膜组织
- TGF-β、IL-6、IL-1β(后两者为 DC 分泌) 作为启动细胞因子,通过 RORγt 和 STAT3 启动 Th17 的分化过程。此过程中,DC 还会分泌 IL-23 作为分化过程的稳定细胞因子。Th17 同时还会分泌 IL-21 增强并促进自己的分化进程。 - 分化成熟的 Th17 会分泌 IL-17 和 IL-22
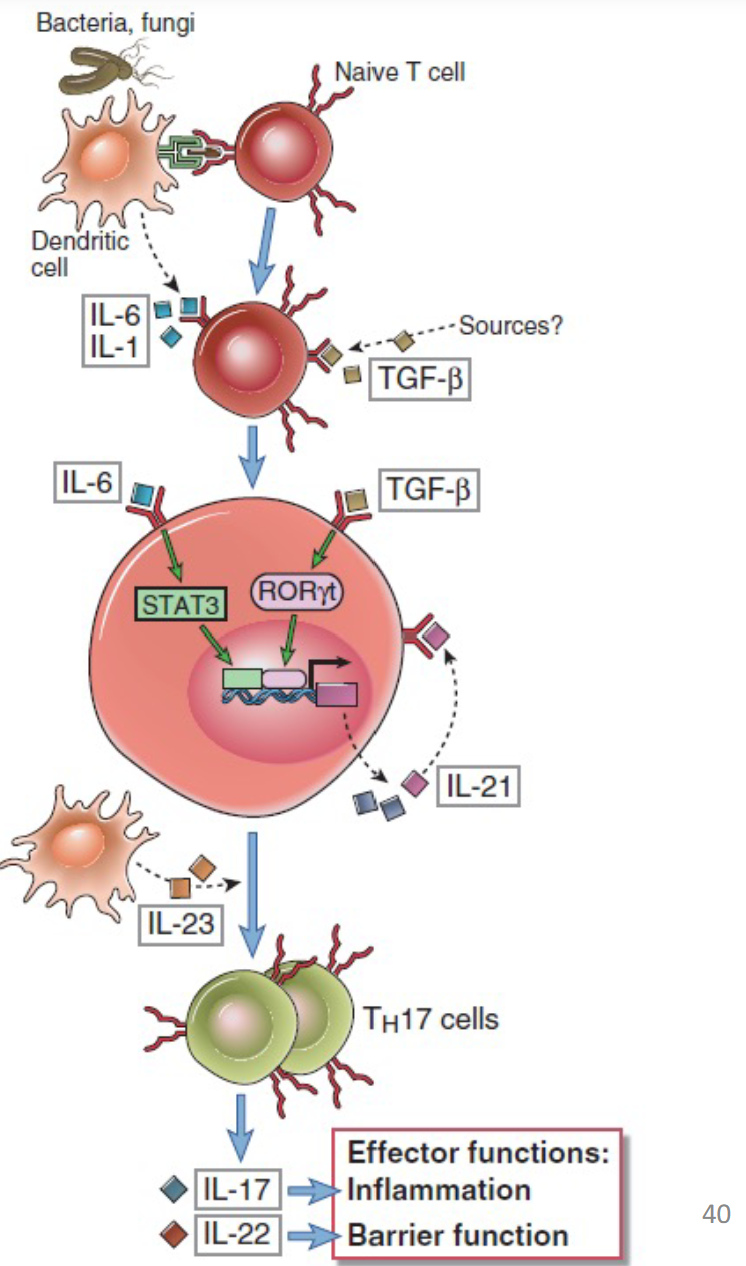
Th17 的核心任务是应对胞质外细菌与真菌感染,其依靠募集中性粒细胞,推动炎症反应和维持上皮、黏膜屏障完整来实现免疫防御。
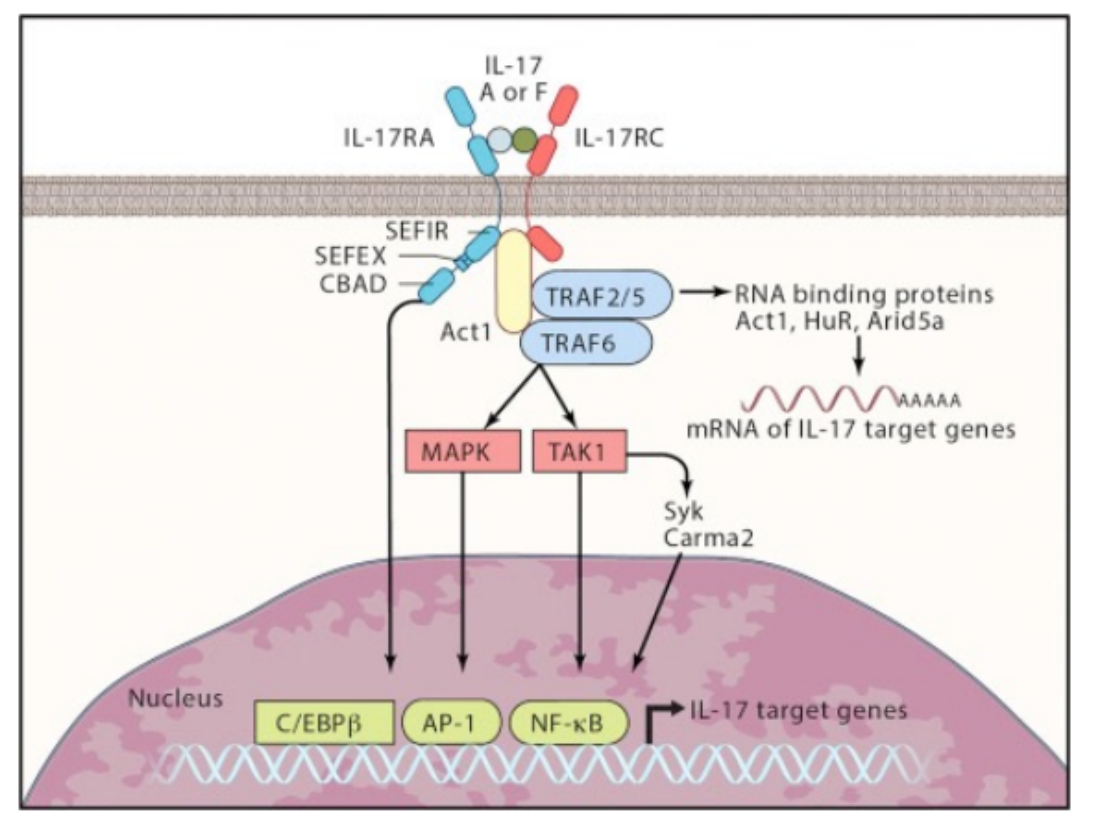
- IL-17:刺激上皮细胞、基质细胞分泌趋化因子和细胞因子的分泌,推动中性粒细胞富集的炎症反应,促进抗微生物物质产生。
- IL-22:作用于上皮等细胞,维持抗微生物肽的产生、屏障完整性维护与损伤修复,增强上皮屏障。
Tfh:臣本布衣,协主公 B 细胞完成分泌抗体之大业
Tfh,即 follicular helper T cell,滤泡辅助性 T 细胞,其驻留于淋巴结的 滤泡与生发中心,主要职责是帮助 B 细胞分泌高质量抗体。
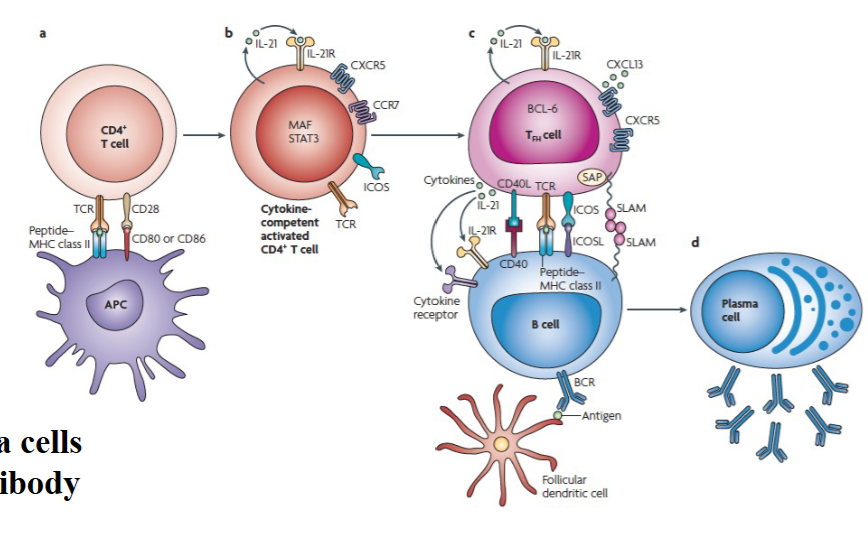
- 在 DC 的激活下,Tfh 前体再次接受活化的抗原特异性 B 细胞的帮助,通过 ICOS 与 B 细胞的 ICOS-L 相互作用,获得明确的分化信号。
- BCL6 是此中被诱导表达的关键转录因子,与 Th17 类似,Tfh 会大量分泌 IL-21 促进分化过程。
- 活化的 Tfh 表面表达 CXCR5,可以感受滤泡区域高浓度的 CXCL13 趋化因子,从而快速迁移至滤泡区域。
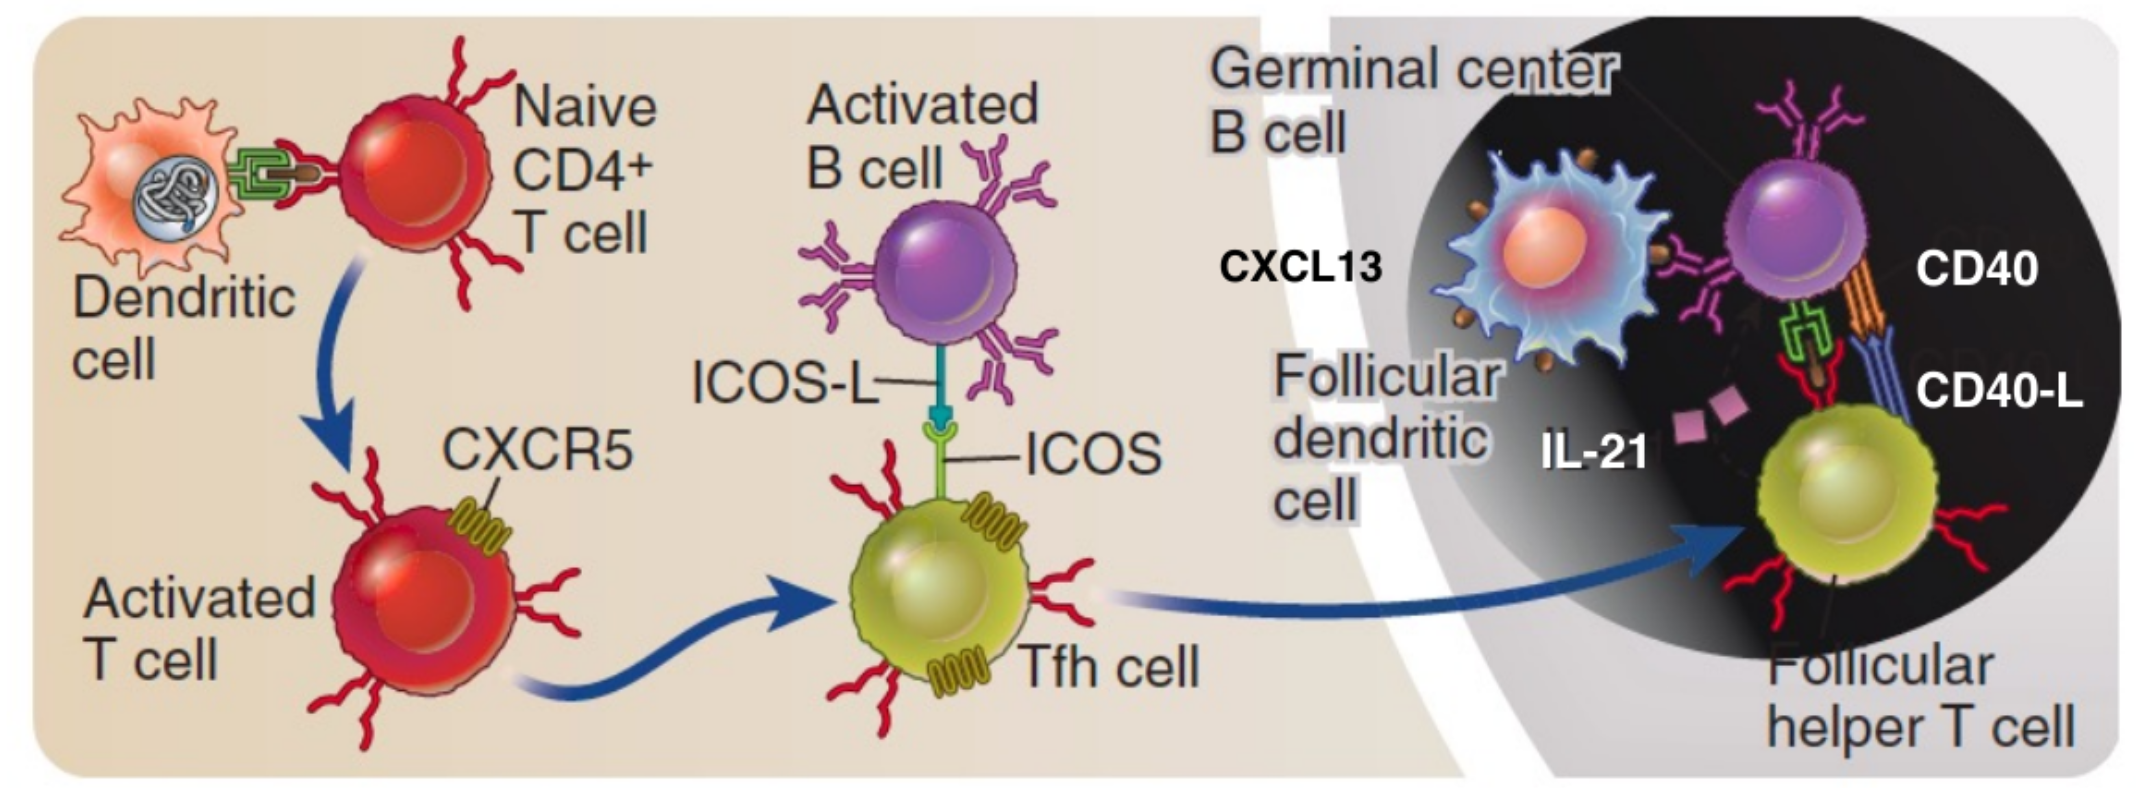
活化的 Tfh 主要通过 IL-21 等细胞因子,以及 CD40L-CD40 作用于 B 细胞,“鼓励”它快速成熟并分泌抗体。
对于 B 细胞来说,它在摄取抗原后,会将其加工并通过 MHC II 呈递给 Tfh,后者识别后会给予其帮助。
- 生发中心,GC,的形成和功能。
- B 细胞分化为浆细胞等,形成持续的抗体应答。
- 抗体亲和力成熟。
- 抗体类别转换。
总结
CD8+ T 细胞介导的免疫过程
在本节中,让我们来了解一下 CD8+ T cell 的三位:CTL、记忆 CD8+ T 细胞和耗竭 CD8+ T 细胞。
CTL:尚方宝剑,带刀侍卫
同 CD4+ T 细胞一众 “协助” 的间接作用不同,活化后的CD8+ T 细胞所分化为的 CTL 可是真刀真枪要和感染组织干一架的。CTL 会直接诱导被感染的宿主细胞死亡,清除病原体赖以生存和复制的场所。
CD8+ T 细胞启动激活需要专业 APC 提供充足的共刺激信号,但已经活化的 CTL 并不管那么多,它要做的就是 识别靶细胞呈递的 MHC I-抗原肽复合物,如果特异性识别成功,CTL 就会大开杀戒(定向释放杀伤颗粒),直接杀伤靶细胞,释放其内容物。
其中 CD8 作为辅助受体协助 TCR 识别 MHC I,而 LFA-1 等黏附分子与 ICAM-1 结合稳定免疫接触。
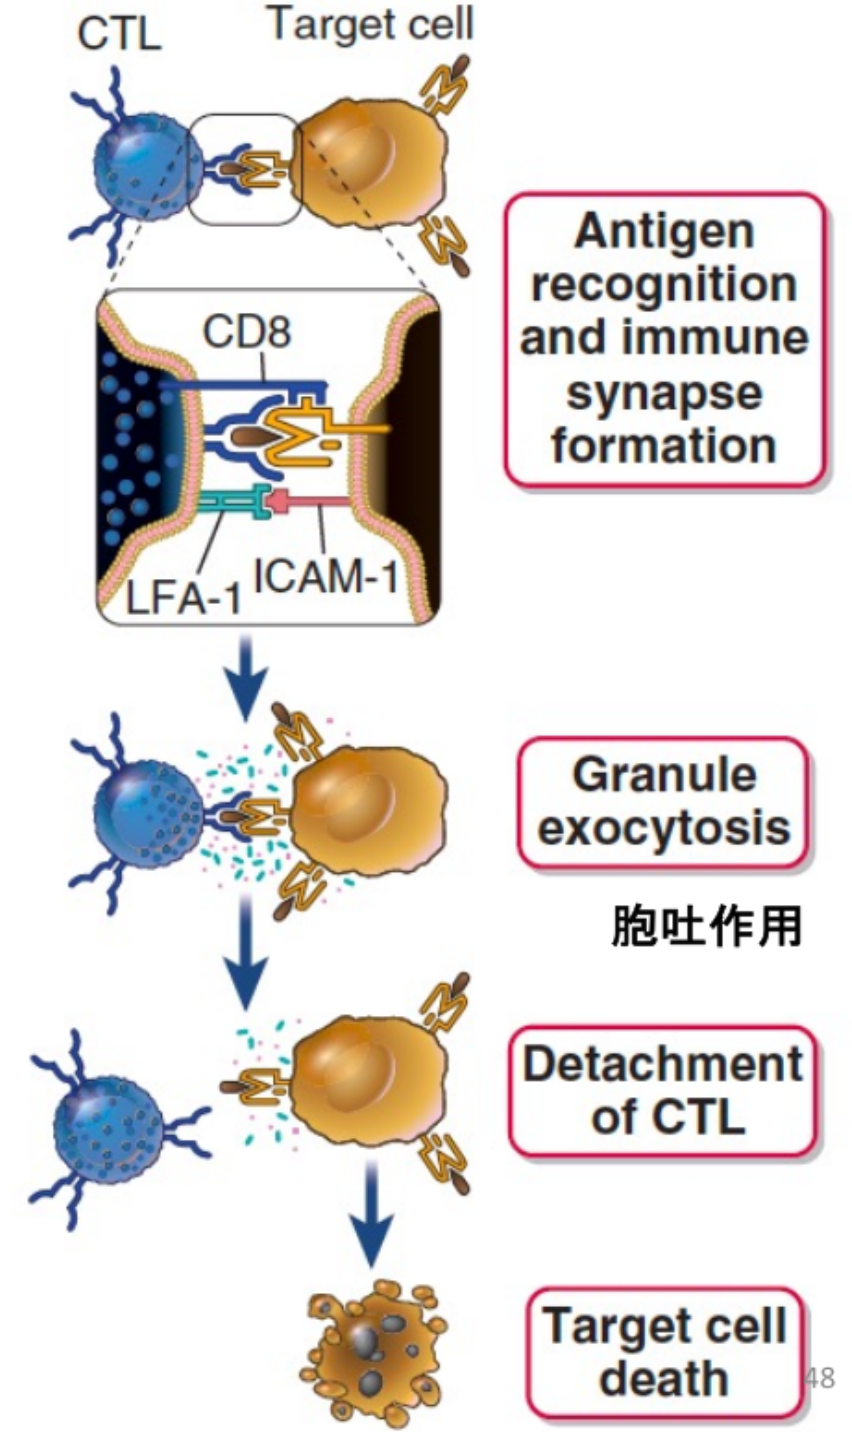
CTL 通过清除感染细胞从而释放胞内细菌与DNA内容、识别并杀死肿瘤细胞来发挥免疫防御作用。
但毕竟是对自己人动刀子,如果 CTL 过于活跃,就可能造成组织损伤。
穿孔素与颗粒酶
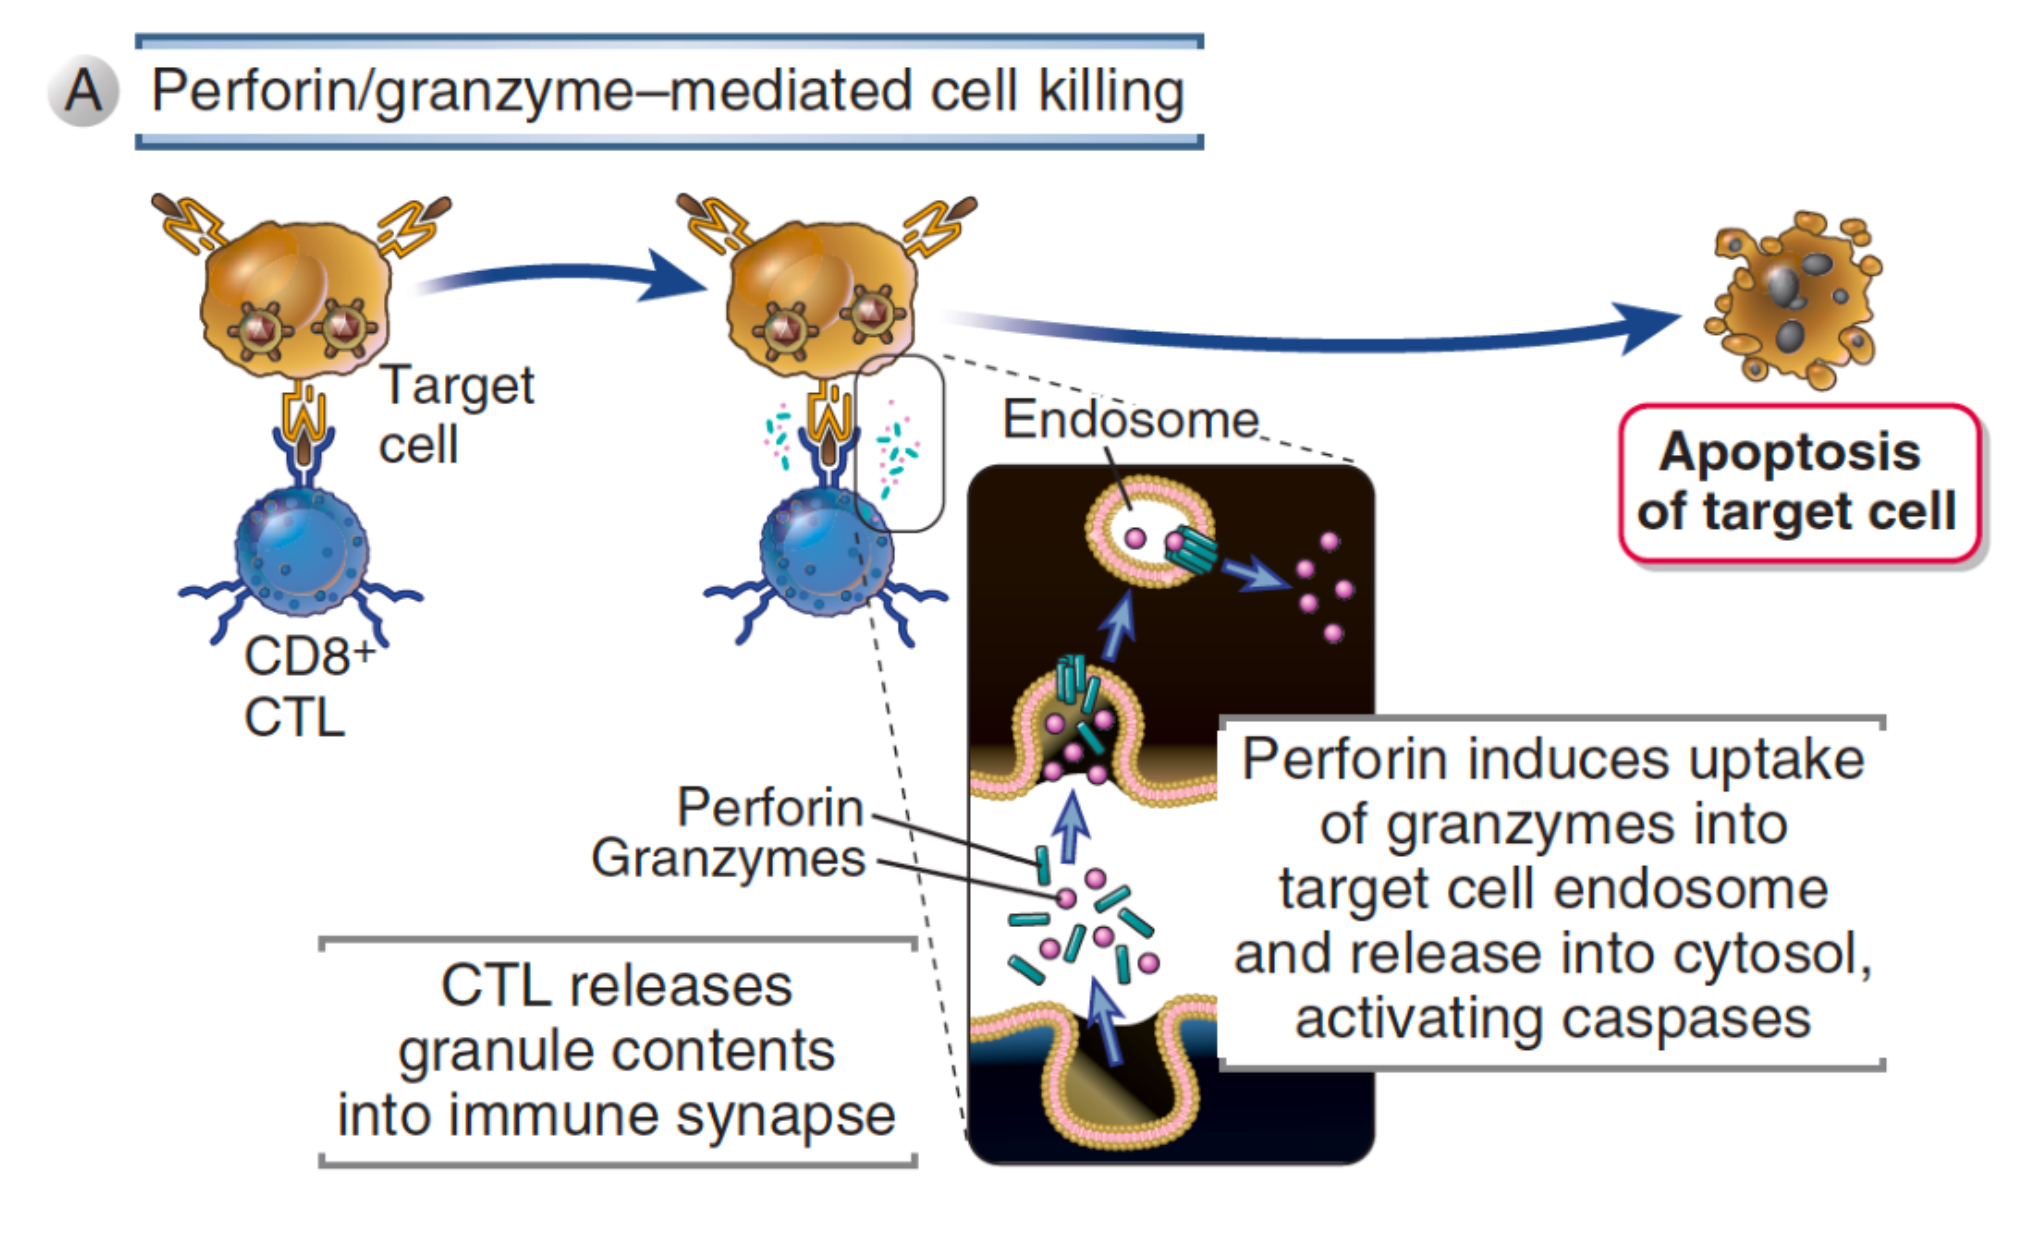
CTL 含有并可以分泌穿孔素与颗粒酶组成的杀伤颗粒:
- CTL 与靶细胞形成免疫突触,完成黏附、识别与可能的分泌
- 识别成功后,杀伤颗粒囊泡极化,向免疫突触迁移并通过胞吐释放
- 穿孔素直接结合上膜,颗粒酶通过内体被摄入,由穿孔素帮助其释放至胞质内。
- 颗粒酶激活 caspase 等凋亡机制,启动靶细胞凋亡。
FasL-Fas 途径
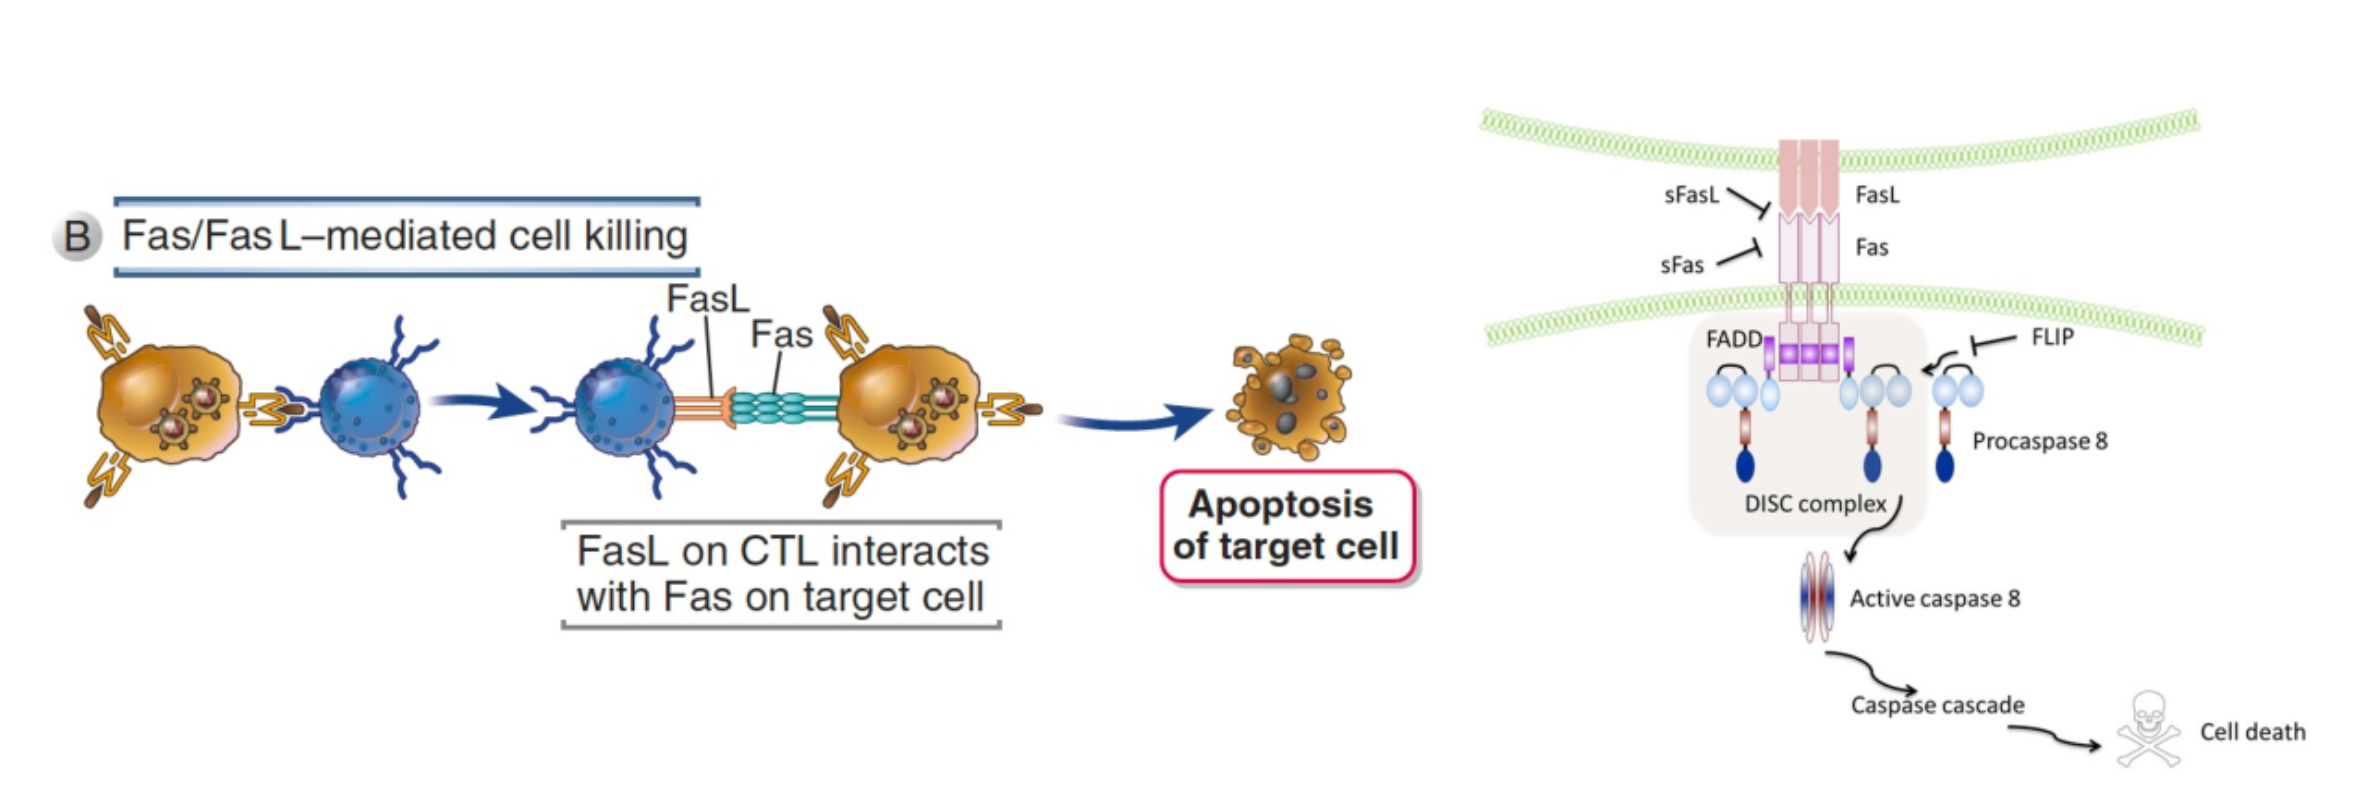
CTL 膜上有 FasL(CD95L),其可与靶细胞表面的死亡受体 Fas(CD95) 结合,从而启动靶细胞内部的凋亡信号。
其他
CTL 也可以通过分泌 IFN-γ 支持巨噬细胞经典活化杀伤作用。
记忆 CD8+ T 细胞:岁月史书,免疫系统里的扫地僧
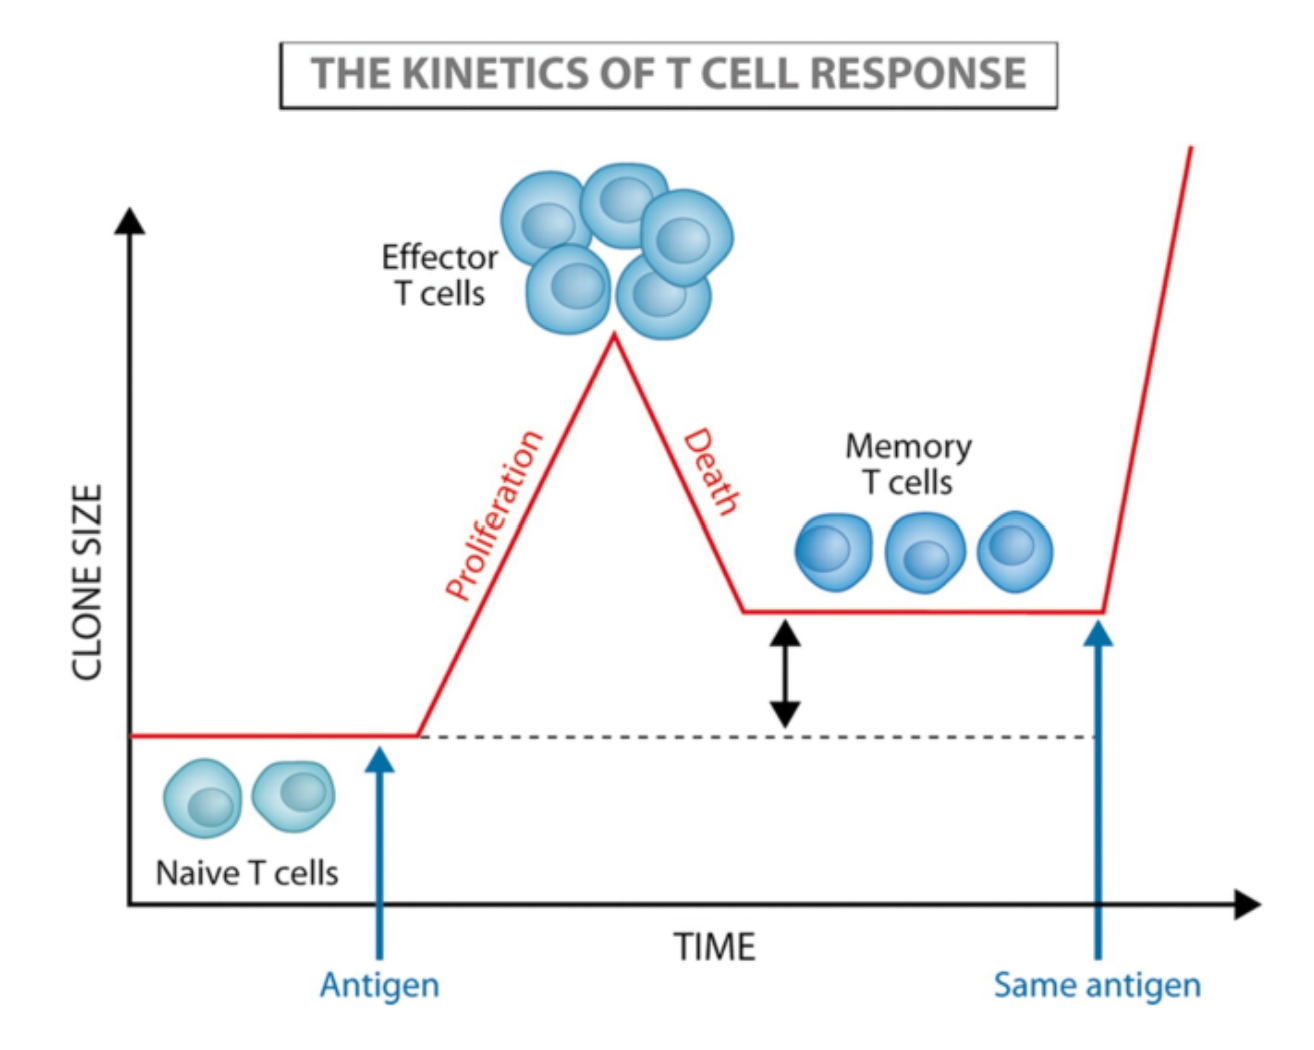
在首次特异性免疫反应结束后,大量效应细胞,而部分分化为记忆 T 细胞的则会长久留存,并通过缓慢且稳定的增殖更新群体。
当抗原再次来袭,记忆细胞可以形成更快,更强大的免疫应答,早早扼杀病原体于摇篮中。
在记忆细胞漫长的蛰伏与等待中,细胞因子给予其存活的必要支持。
在不同的器官中分布着不同类型的记忆细胞,他们在分工上略有区别。
耗竭 T 细胞:累了兄弟,摆了
在长期、持久的慢性刺激或肿瘤环境下,效应 T 细胞可能会形成耗竭状态,表现为增殖能力下降,分泌能力下降,杀伤能力下降,表达多种抑制受体(PD-1、TIM-3、LAG-3)等等。
耗竭是一种细胞分化状态。
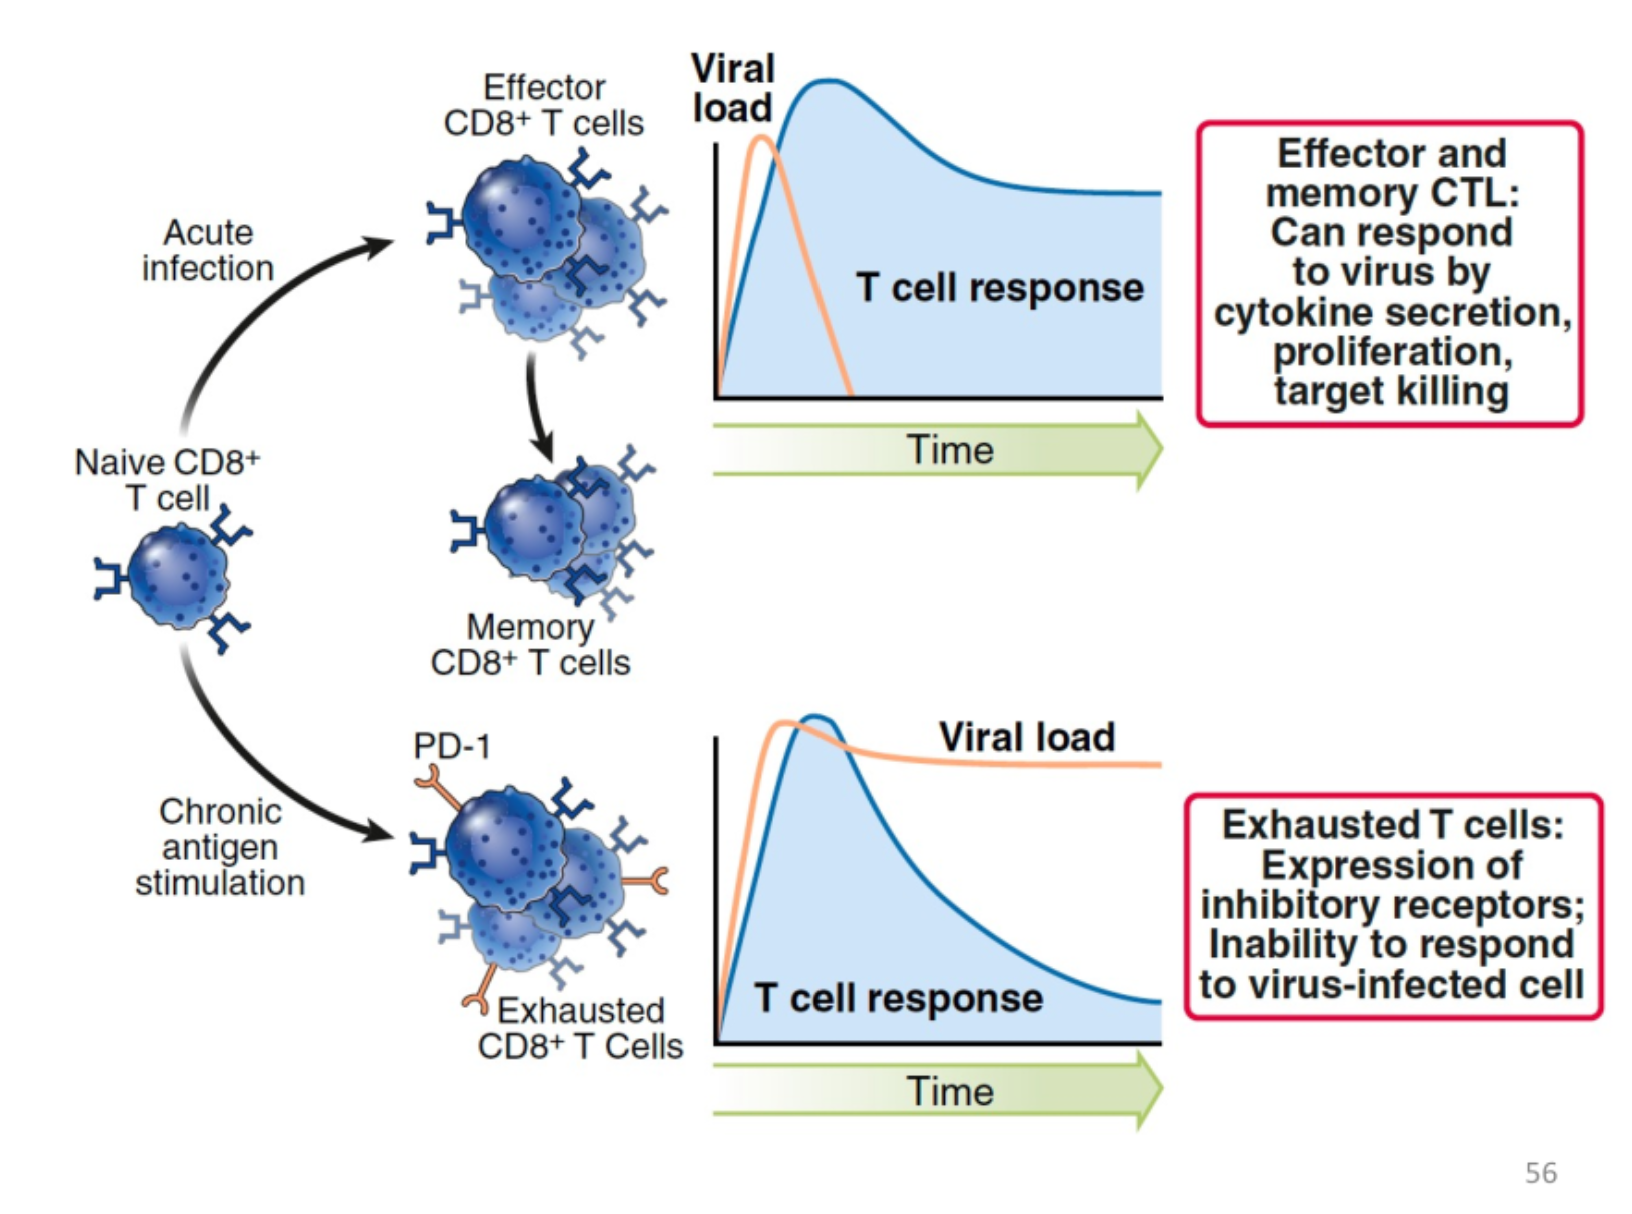
在一定情况下,阻断 PDL1-PD1 的作用可以恢复耗竭 T 细胞的部分功能。