淋巴细胞发育
考点
阴性选择与阳性选择、V(D)J 重排核心过程、Pre-TCR/Pre-BCR 核心作用
淋巴细胞发育概述
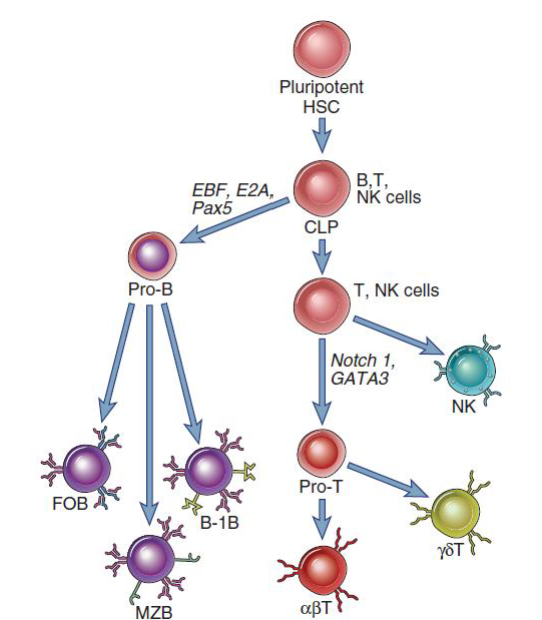
一个经典的 B/T 细胞发育树如下,它们都来自于同一种祖先细胞:
谱系定向
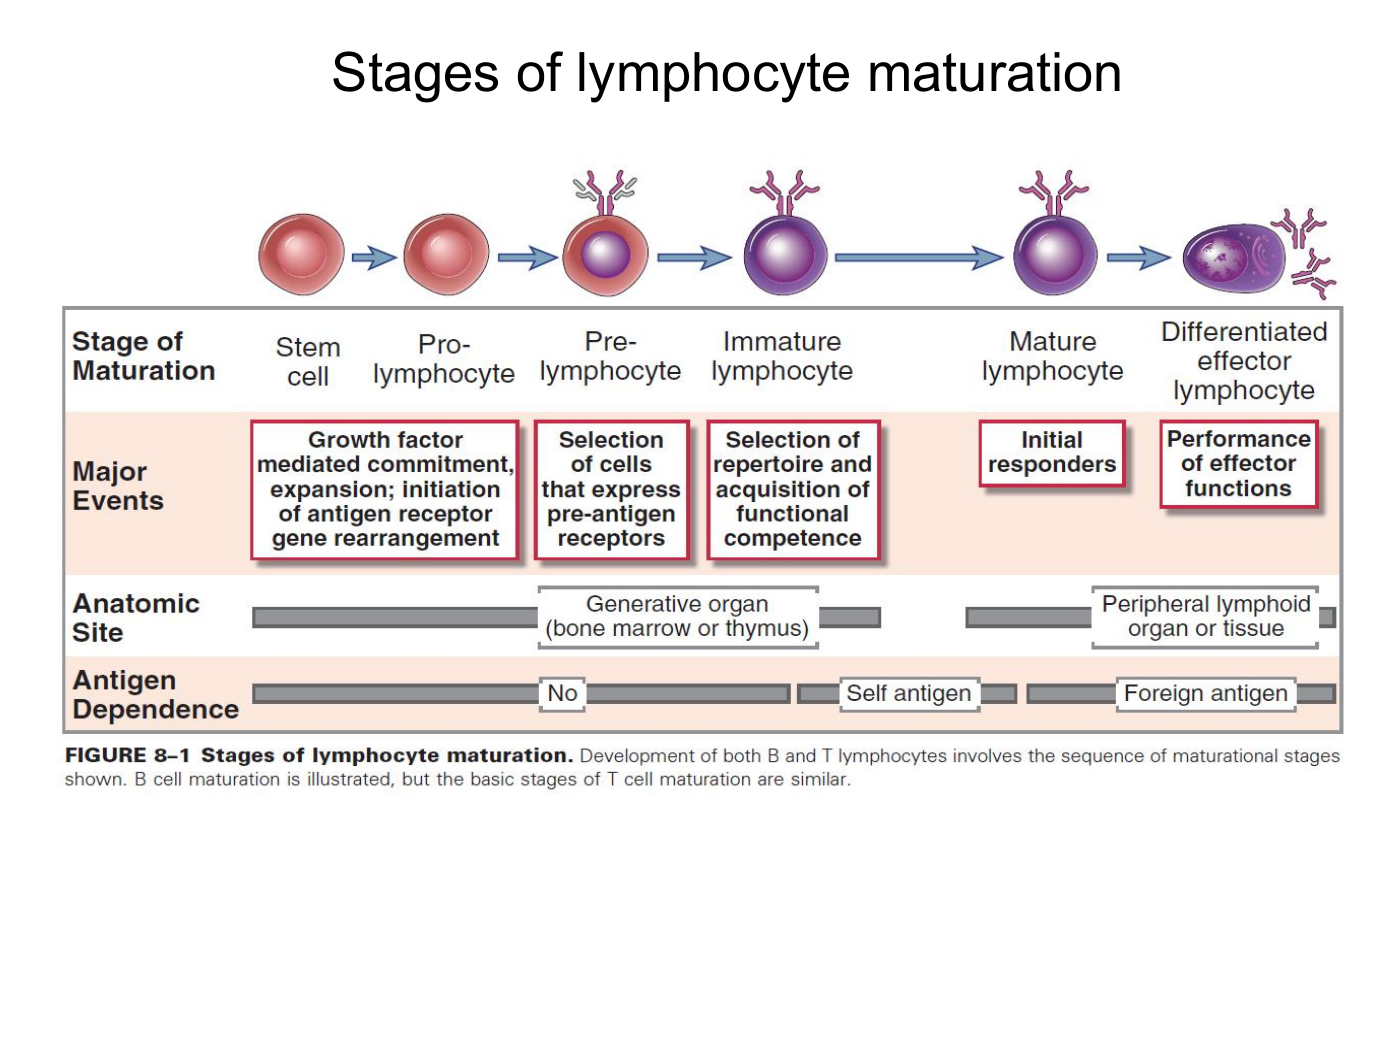
在一开始,故事发生于骨髓中的多潜能干细胞——祖细胞,此时它具有分化为多种血细胞的可能性。而在微环境与相关调控因子作用下,它逐渐滑向 B 细胞或者 T 细胞的发育命运。
增殖
走向相应命运的细胞会开始增殖,这是为了后续分化与发育成熟提供充足的细胞群。
抗原受体基因的重排与表达
B 细胞或 T 细胞都需要各自的独特受体来识别特定抗原,即 BCR 与 TCR。
而其受体具有可变区,以形成多种多样的受体可结合区域,实现这个结果的过程被称为 V(D)J重排,它是一种体细胞重编程。
阳性选择与阴性选择
在各自的免疫中枢(脊髓与胸腺中),B 细胞和 T 细胞受到相应的 “质检” 过程:
- 阳性选择: 保留具有合适结构受体的细胞
- 阴性选择: 去除对自身有危险免疫反应的细胞
T 细胞的一生:发育、成熟与中枢耐受
T 细胞可以说是体内免疫系统真正的核心,key role,所以它的发育过程也是免疫系统的重中之重。
在高中生物中,我们已经知道,在骨髓中分化出的 T 细胞需要迁移至胸腺继续它的发育路程。
两个萝卜坑:CD4 与 CD8 的出现
在刚进入胸腺的时候,T 细胞并不表达 CD4 或 CD8,或者来说,它们还只是一张白纸。
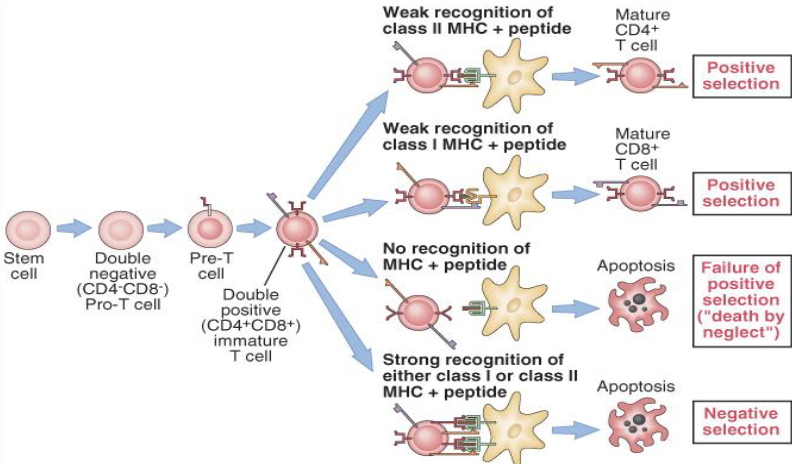
进入胸腺后,T 细胞会进行一次 双阳性表达,即在细胞膜上同时表达 CD4 和 CD8。此时,T 细胞会与胸腺上皮细胞打照面,这个过程中,T 细胞会用自己的 TCR 尝试去识别胸腺上皮细胞表面的 MHC II 或者 MHC I。
对于识别到前者的 T 细胞,它会下调 CD8 的表达,成为 CD4 T cell,反之亦然。从而将一群 T 细胞引导向两种不同的分化命运。
这有什么道理吗?不知道!科研界对此没有一致的看法,主流的观点认为这个过程完全是在随机蒙,T 细胞们随机摸奖,手慢无。
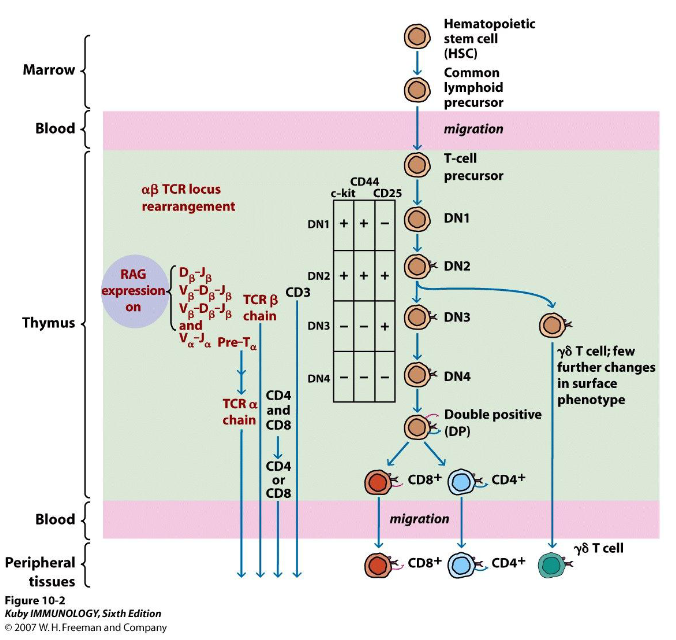
详细来说,通过 CD44、CD25 marks 的表达情况(小鼠分期),研究者将 T 细胞的发育过程通过流式分出了四个过程。
其中,最严格的发育阶段来自于 DN2 时期,DN2 一旦启动,T 细胞的分化命运就再无回头可能。
- 在 DN2 时期,CD3 被表达,它是 T cell 的一个 key gene。它可以与 TCR 相互作用,在发育过程中,它将与 TCR β chain + pre-Tα 结合形成 pre-TCR,并帮助其转移至细胞膜表面,
- 作为核酸内切酶,RAG 的表达是 TCR 重排开始的发令枪,它负责启动 V(D)J 重排过程,并由此形成 TCR β/α chain。
- DN3 -> DN4 时期,TCR α chain 重排开始,并取代 pre-Tα 形成完整的 TCR,与 CD3 结合形成 TCR-CD3 复合体。自此 T 细胞做好了接受后一阶段的阳性选择和阴性选择。
穷举可能性:TCR 重排
RAG 的表达意味着 TCR 重排的开始,但是这个重排是怎么开始的?
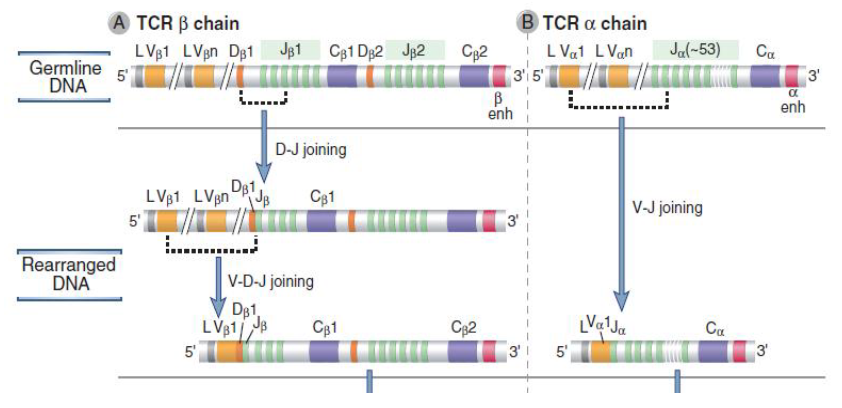
整个 TCR gene,包含被命名为 V(Variable)、D(Diversity)、J(Joining) 和 C(Constant) 四个区域,其中:
- V(D)J 负责可变区的重组重排
- C 为恒定区,也是区分不同免疫受体分子/抗体的关键,它一般参与 TCR/BCR 的膜上锚定,或者作为 IgG/IgM 等抗体的重链不变区组成。
RAG 对整个重排过程起到主导作用,因为由它来负责识别和剪切相应片段:
- 在剪切时候,RAG 会识别 RSS(重组信号序列),RSS 标明了一个片段 Unit 的范围,指导 RAG 在适当的位置做出剪切。
- 然后细胞会打开剪切形成的发卡结构并适当编辑编码端序列(如果需要的话)
- 通过 NHEJ 非同源末端连接将切开的两端相连
- 完成一次重组操作
以 TCR β chain 的重排过程举例:
- RAG 先选择一个 Jβ 里的片段,将其与 Dβ 相连,形成 D-J
- 再选择一个 Vβ,将其与 D-J 相连,形成 V-D-J
- 整个重排 DNA 就会包含既定的 V-D-J 组合,并为其预留一个 C 区域
在之后的表达中,转录出的前体 RNA 会发生分子剪切,将之前重排没有删干净的其他区域剪切掉,在 mRNA 中 完成 V-(D)-J-C 的完整序列组装,并被翻译为蛋白质。其中 L(Leader) 区域作为前导信号肽引导肽链进入内质网加工并分泌。
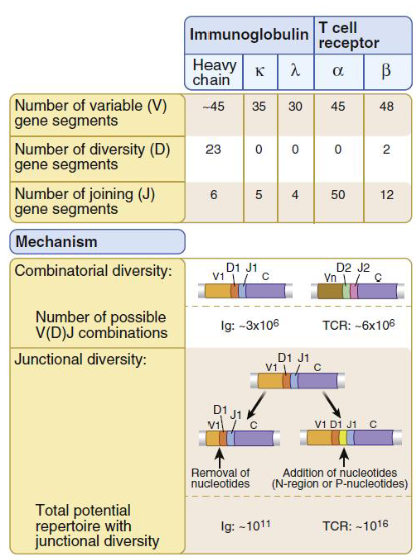
为什么要搞这么复杂?因为这可以让 T 细胞在有限的 DNA 序列里产生足够多的 TCR 可能,同时会发生前文所述的,对编码序列的随机核苷酸插入(TdT,末端脱氧核苷酸转移酶),造成可能性的进一步飙升。
TCR 重排的中期答辩
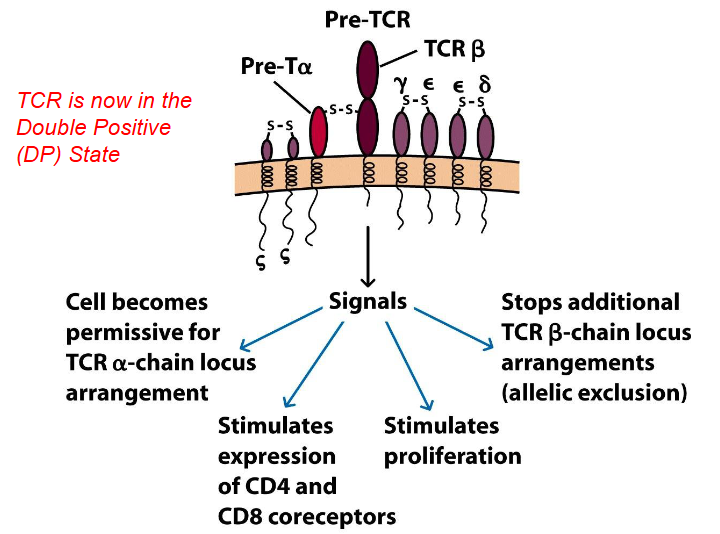
在前文已经提到,TCR α/β chain 的重排、表达与合成不是同时发生的,而是在两个不同的发育阶段。而在 T α chain 还未出现的时期,TCR β chain 会先与 pre-Tα 结合形成 pre-TCR。这至少有以下作用:
- 促进存活和增殖:成功重排并合成出 TCR β chain 的 T 细胞才能继续发育分化。
- 抑制进一步的β链重排:子代会从父本母本分别继承一份 TCR 相关基因,当其中一方的 TCR β chain 重排完成后,应当及时建立β链的等位基因排斥,抑制另一方的重排。
- 促进CD4和CD8表达:推动 T 细胞进入双阳性检查。
- 启动α链重排:为后续α链重排创造条件,最终形成完整αβ TCR。
T 细胞的挂科率有多高?
胸腺中,大约有 98% 的细胞在此死亡,当然这不是什么炎症过程,实际上这是一场 T 细胞的超大型考试,而其通过率特别低。
虽然研究界对 T 细胞筛选的具体标准一头雾水,但是还是有一定共识:胸腺在筛选那些对所呈递自身MHC + 自身抗原组合响应刚刚好的 T 细胞:
- 几乎无反应的 T 细胞难以在外周中发挥免疫功能。
- 具有超强免疫反应的 T 细胞很可能对自身器官发起攻击,痛殴友军!
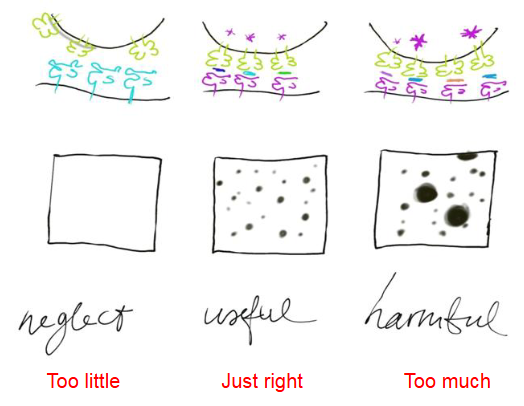
严谨点说,胸腺对 T 细胞的筛选可以涵盖为 “两步走” 的过程:
- 阳性选择:筛选出能够恰当识别自身 MHC 分子的 T 细胞。
- 阴性选择:筛选掉对自身抗原有强烈反应的 T 细胞。
- 这部分就是 中枢耐受 的形成过程,它可以尽可能保证大部分 T 细胞对自身正常细胞不感冒,当然如果有纰漏,也有外周免疫耐受机制为其兜底(2025年诺奖发现)。
当然目前研究界还没有搞定这两个过程到底有没有先后顺序,大家还是只能说随机碰撞过程
AIRE:九省通衢之省长大人
胸腺要对 T 细胞进行阴性选择,就不得不面对一个尴尬的问题:自身组织的抗原从哪来?
显然不能从血液中让各个组织自己表达自己独特的蛋白并转运至胸腺,且不说让循环系统一团槽,如果哪天一个病毒细菌偷偷溜进来让胸腺呈递给 T 细胞,这不就建立了一个很可怕的中枢免疫耐受了吗??
所以胸腺,或者说胸腺上皮细胞,有一个很独特的属性,它能表达极多 组织限制性抗原,也就那些被表达于特定终末分化后,表达于特定组织细胞上的独特抗原。
这要归功于 AIRE (自身免疫调节因子),它能促进胸腺上皮细胞表达这些独特抗原。胸腺可以将这些抗原用于对 T 细胞的筛选当中。
总结
B 细胞的一生:发育、成熟与中枢耐受
同 T 细胞有所区别,B 细胞同大多数淋巴细胞一样,其发育的主要场所都在骨髓中。而成熟过程也会发生在其迁移至脾、淋巴结中发生,并发挥相应免疫监视功能。
B 细胞的发育、
简化来讲,B 细胞的发育和 T 细胞有诸多相似之处。
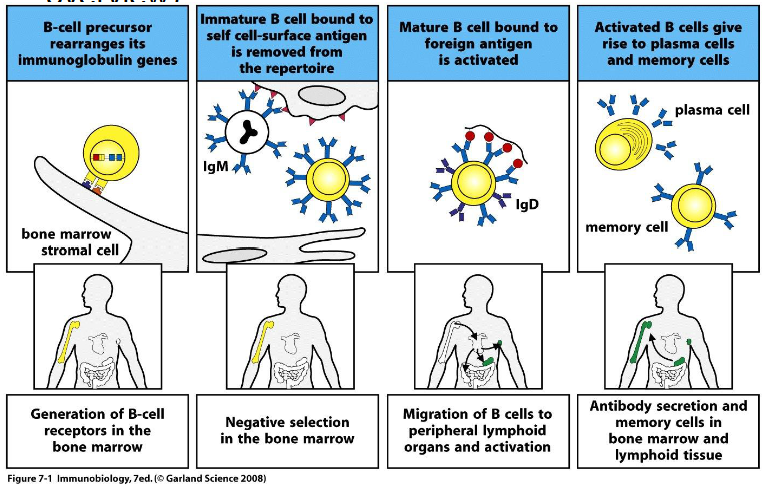
- 骨髓内产生BCR:通过免疫球蛋白基因重排,形成抗原识别受体。
- 骨髓内进行自身反应性筛选:控制可能攻击自身的细胞。
- 迁移至外周并参与应答:成熟B细胞遇到相应抗原、获得必要信号后被激活。
- 进一步分化:产生分泌抗体的浆细胞及记忆B细胞。
BCR:一种喜欢宅在膜上的抗体
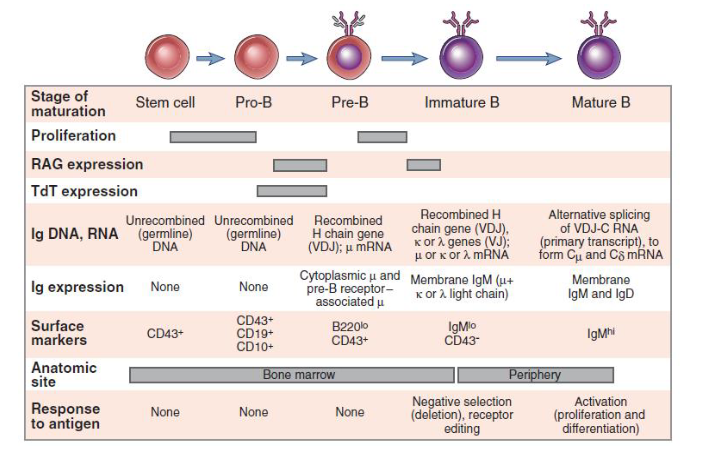
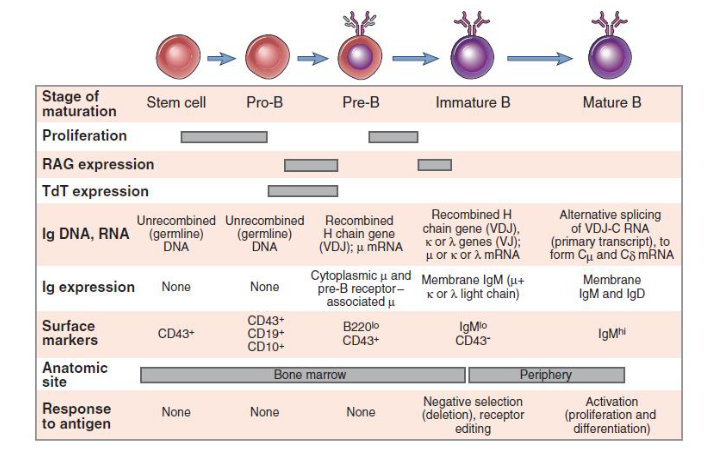
在 pro-B cell 阶段,主要发生 BCR H chain 的重排
其中 Early pro-B cell 阶段发生 D-J,Late 发生 V-DJ
而轻链重排则要等到 small pre-B cell 阶段了
Structural principles of B cell antigen receptor assembly
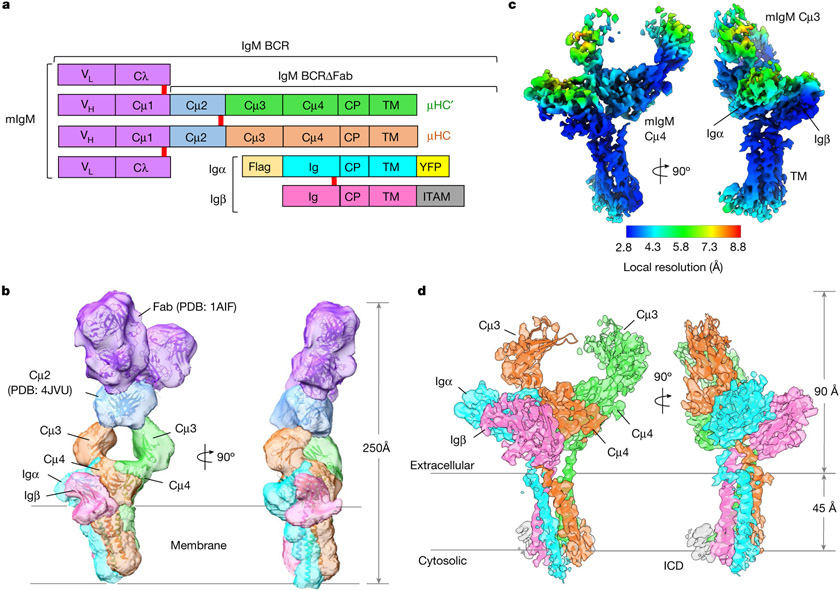
对于 B 细胞来说,BCR 与分泌出去的抗体区别其实并不大,换句话来说,BCR 就是一种宅在膜上的抗体!
一个完整的 BCR 包含 膜型免疫球蛋白 mlg 与 CD79a/b 两部分,前者负责抗原识别,后者负责信号转导。
以 BCR mlg (以下都简称 BCR)为例,其包含 两条相同重链和两条相同轻链,且两者都 包含可变区与恒定区。
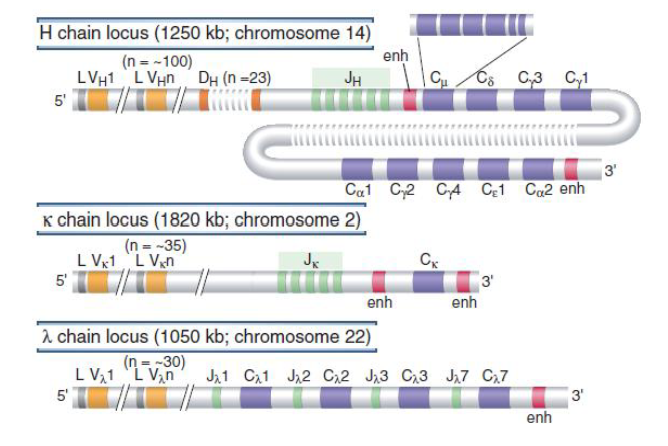
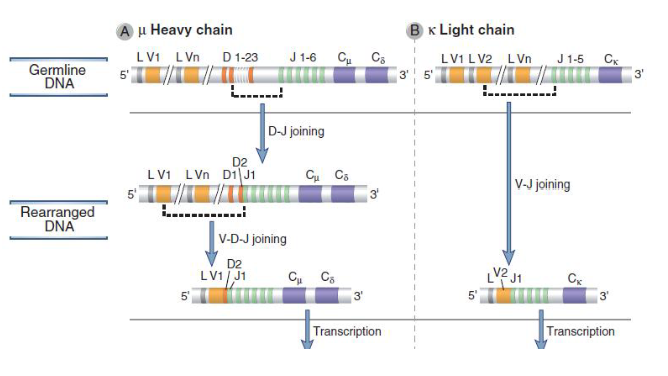
与 T 细胞类似,B 细胞也会进行一次重排:
- 重链:先进行D–J连接,再进行V–DJ连接。
- 轻链:直接进行V–J连接。
在形成前体 RNA 时候,还会包含多种 C 区序列,与 T 细胞不同,B 细胞的 C 区选择多种多样,包含了 μ、γ、α、ε、δ 等等不同大类,大类里还有多种选择,不同的 C 区选择就形成了不同的免疫球蛋白。
比如 IgM 对应 Cμ 大类,而 IgG 对应了 Cγ 大类(你当然可以发现,Ig后面跟的字母对应希腊字母英文读音首字母)。
膜型
而 C 区以外,还有可供选择的 膜相关外显子 序列,如果是 BCR,在翻译时候细胞会携带上相应外显子序列,使得 BCR 成为膜上蛋白。而浆细胞等则会上调不携带相关外显子的 mRNA,使得 Ig 变成分泌型蛋白,即抗体。
一个 B 细胞包含两种不同的轻链基因,但是一个典型的 B 细胞只会选择其中一个作为自己免疫球蛋白的轻链:κ或λ。
B 细胞的中期答辩
与 T 细胞类似,B 细胞在 pro 阶段后需要进行一次 中期答辩。重排并成功表达的 μ重链(一般都是从 Cμ 开始)在 pre-B 阶段会与替代轻链(VpreB、λ5),以及 CD79a/b 形成 pre-BCR。
pre-BCR 的形成会检验重链是否正常工作,其至少有以下意义:
- 获得存活和增殖信号,扩增成功形成μ重链的细胞。
- 抑制进一步的重链重排,建立重链的等位基因排斥。
- 随后进入轻链重排阶段。
- 下调替代轻链表达,为真正轻链接替创造条件。
完成增殖的 Large pre-B cell 会转入 Small pre-B cell阶段,并启动轻链的重排过程。
未成熟 B 细胞的成年礼
在正式表达出轻链后,B 细胞得以在膜上呈现完整的 IgM,这标志着 B 细胞进入了 Immature B cell 阶段,它准备好接受最后的考研了!
如同 T 细胞需要进行阳性与阴性筛选一样,B 也需要检验其是否有强烈的自身免疫反应。但是对于 B 细胞来说,其有 “纠正错误” 的机会:
- 受体编辑:再次进行受体基因重排,主要涉及轻链,尝试改变抗原识别特异性。
这是独特于 T 细胞的机制,这意味着 B 细胞可以通过再次调整轻链序列来改变抗原识别。
但是如果还是会有自体免疫反应活性,B 细胞可能会面临被清除的命运。
总结