B 细胞与体液免疫
我在启动!B 细胞活化与 T 细胞依赖应答
对于一个 B 细胞来说,其在膜上会表达一个能个识别特异性抗原结构的一个识别受体:BCR,活化的开始就是当 BCR 接触到一个其外来抗原的时候……
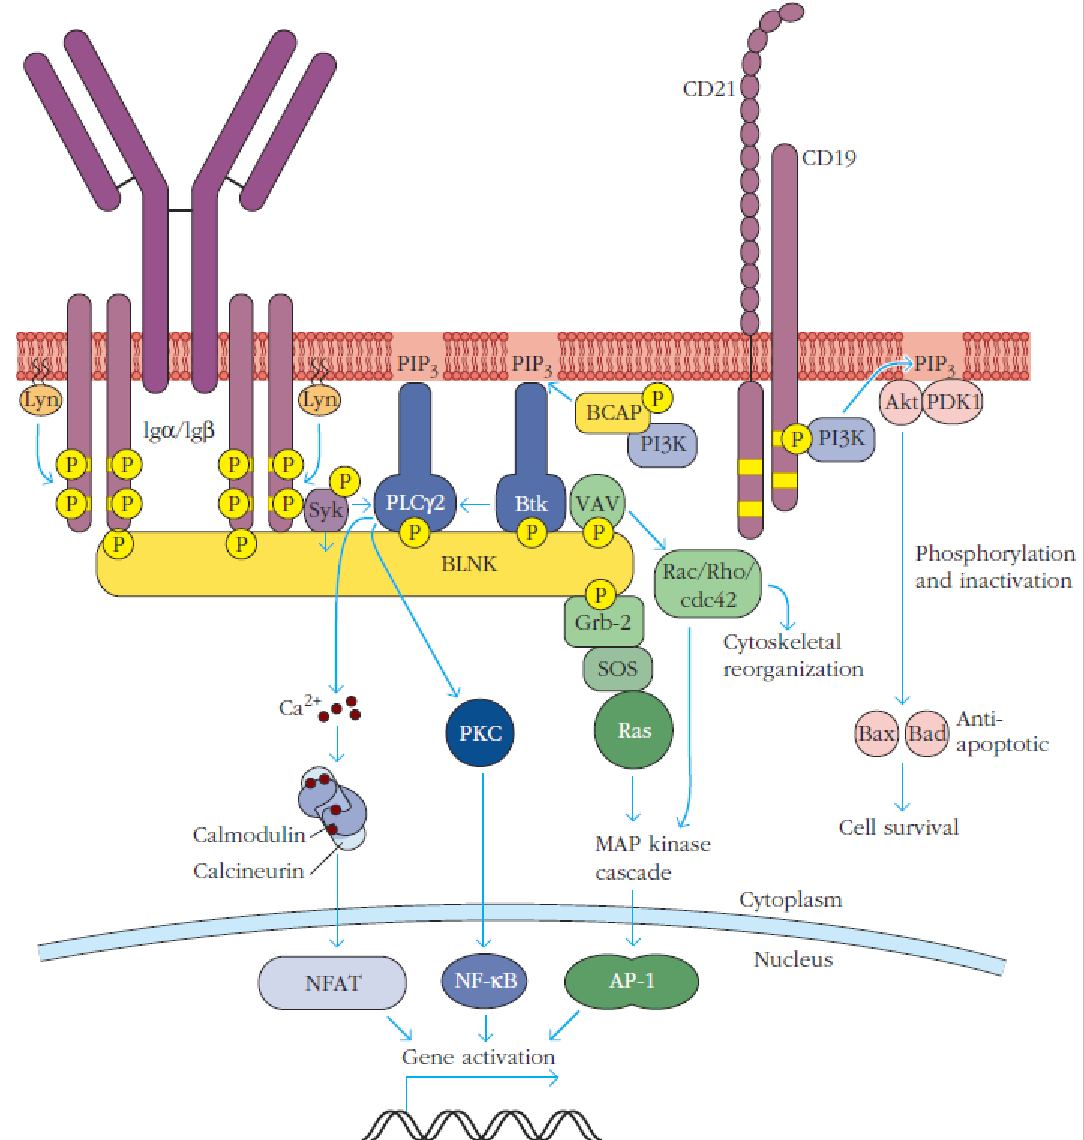
B 细胞活化类型
B-2 B cell 通过 TD (T 细胞依赖应答)方式激活,Th 细胞通过 CD40L-CD40 帮助提供完成 Angtigen-BCR 识别的 B 细胞,提供第二活化信号,并参与之后的细胞因子分泌。
B-1 或边缘区 B cell 可以通过 TI (非 T 细胞应答)方式激活,激活此类 B 细胞的 TI-1 抗原大多具有丰富的抗原表位,一次可以激活大量的 BCR,产生极强的激活信息。而 TI-2 通过跨连 C3d 实现额外的激活信号。
B 细胞大集会——活化前都在哪?
成熟初始 B 细胞会在血液、淋巴和次级淋巴器官之间循环,并进入淋巴滤泡,也就是 B 细胞主要聚集的区域。
吸引 B 细胞聚集于淋巴结滤泡的信号主要来自于 FDC (滤泡树突状细胞)分泌的趋化因子 CXCL13 (由 B 细胞上 CXCR5 感受)。同时,包括 FDC 在内的多种固有免疫细胞还会分泌 BAFF 作为 B 细胞在滤泡内的生存支持信号。
I AM READY! TD 途径的 B 细胞活化过程
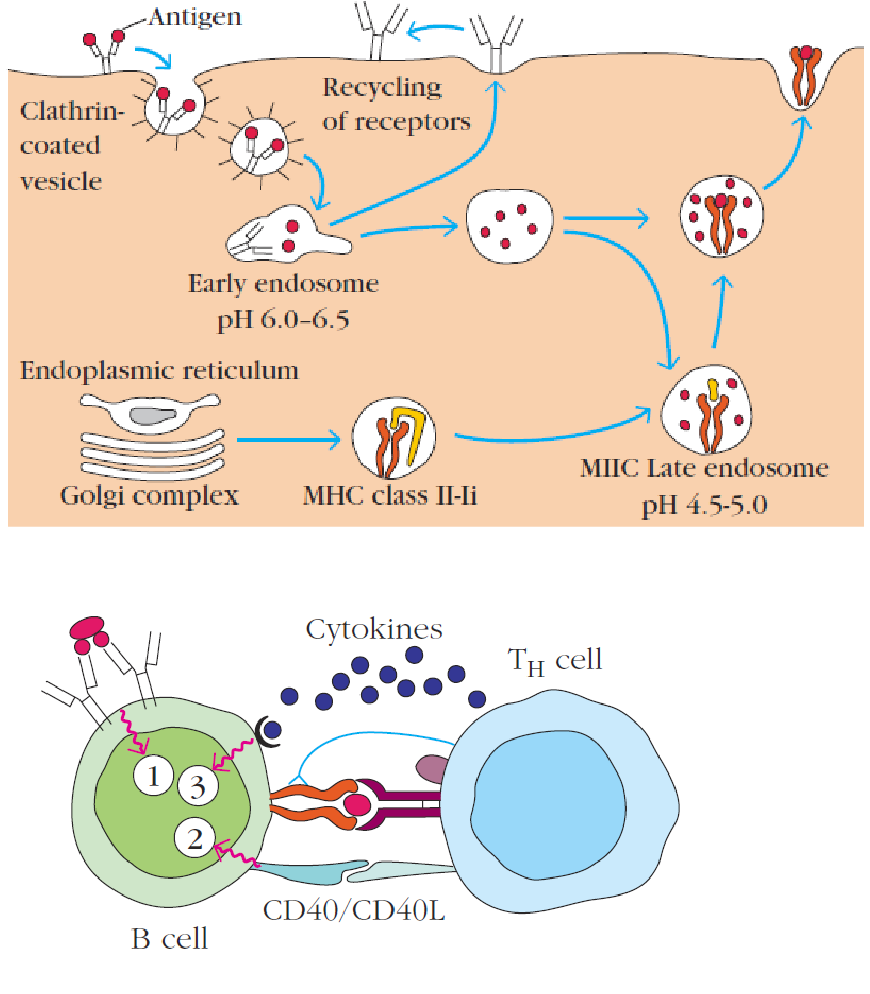
在一开始,B 细胞的 BCR 在周围抓住了一个它能识别的抗原,B 细胞于是将其内吞、加工成为抗原肽,然后通过 MHC II 展示于膜表面,此时它相当于成为了一个 APC,并开始迁移,期待它的 “王子” 找到他。
识别的具体过程中,BCR 在结合抗原后会形成一个 B 细胞的 “铺展-收缩” 的形态快速改变。这是为了让识别到抗原的 BCR 快速聚集成簇,并迁移到 脂筏 上(包含大量的胆固醇),这有助于固定 BCR 分子并完成进一步下游信号的传导。
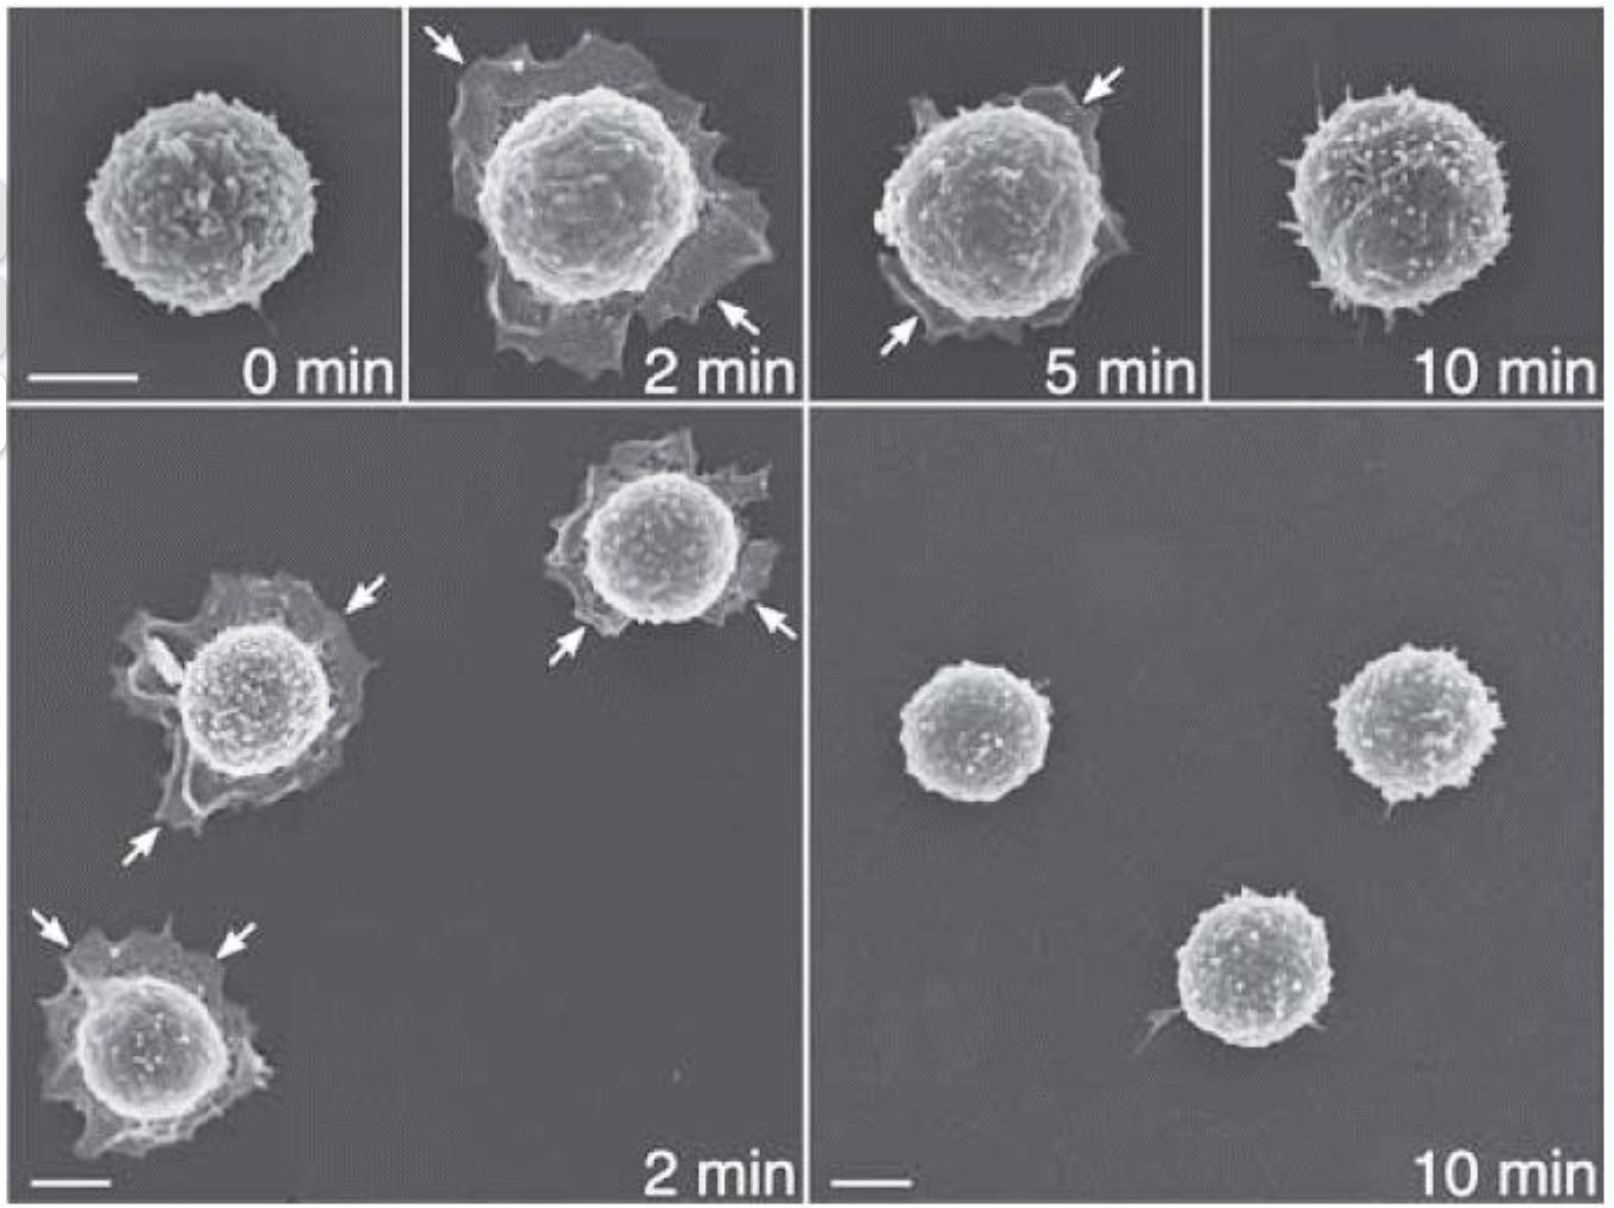
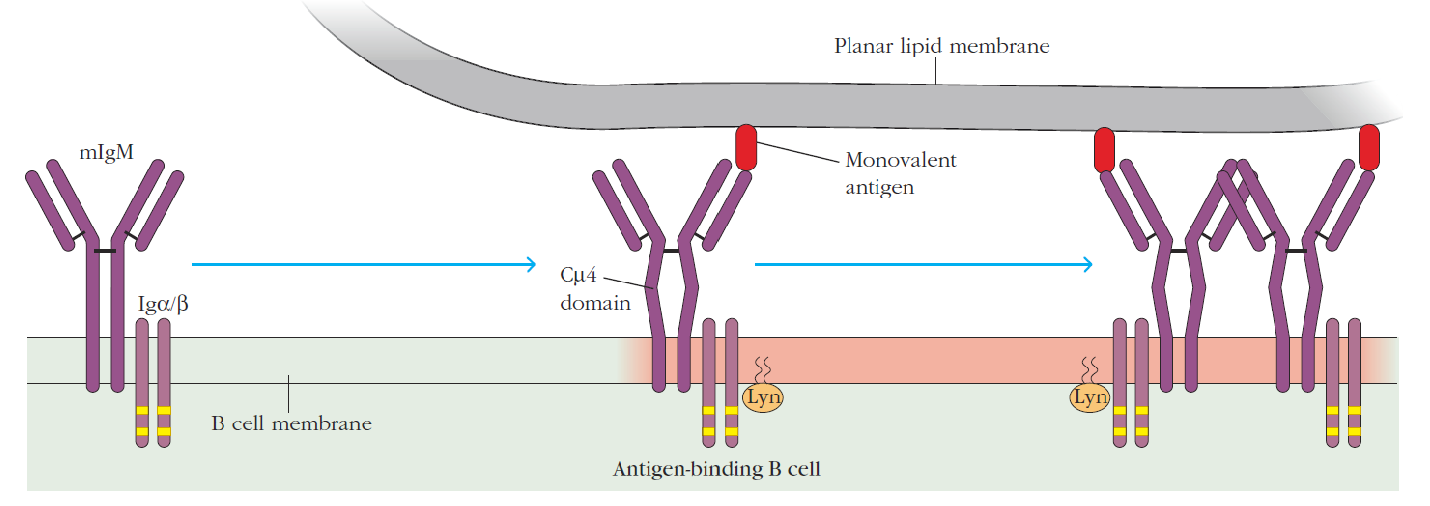
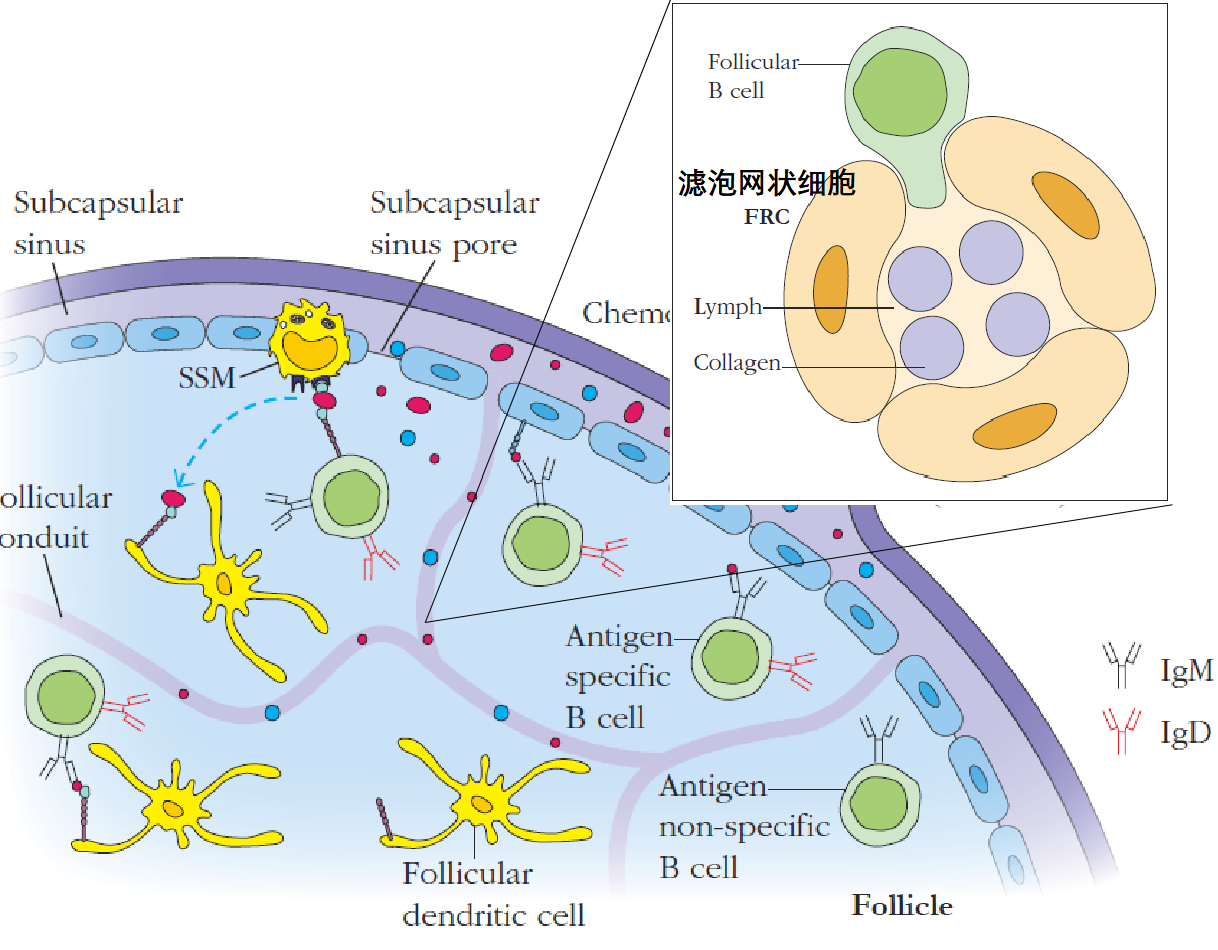
被膜下淋巴窦
滤泡 B 细胞可以直接从淋巴液里获取到可溶性的小型抗原,但也不完全依赖这个途径。
在淋巴结中的 SCS (被膜下淋巴窦)巨噬细胞,即 SSMs 虽然吞噬能力有限,但是其高水平表达一些能够结合未经加工处理抗原的分子,以进行捕获和滞留。它们就像片儿警一样将抗原通过补体受体一路传递给 FDC 和 B 细胞,直到被后者所识别。
处于准备活化状态的 B 细胞上调了自己的 CCR7,同时也持续表达 CXCR5,这有助于它迁移到淋巴结内 B/T 细胞区域的交界处,有利于同样可以识别其呈递抗原肽的 Th 找到它。
如果运气不错,命中注定的那个 Th 很快找到了这个 B 细胞,并尝试用其 TCR 识别 B 细胞呈递的 MHC II 抗原肽复合物,如果识别成功,Th 细胞就会推动 TD 途径的推进,通过 CD40L-CD40 与 IL-4 在内的细胞因子等多个信号激活这个 B 细胞。
WHERE SHOULD WE GO, SIR? 轰轰烈烈的 B 细胞大活化!
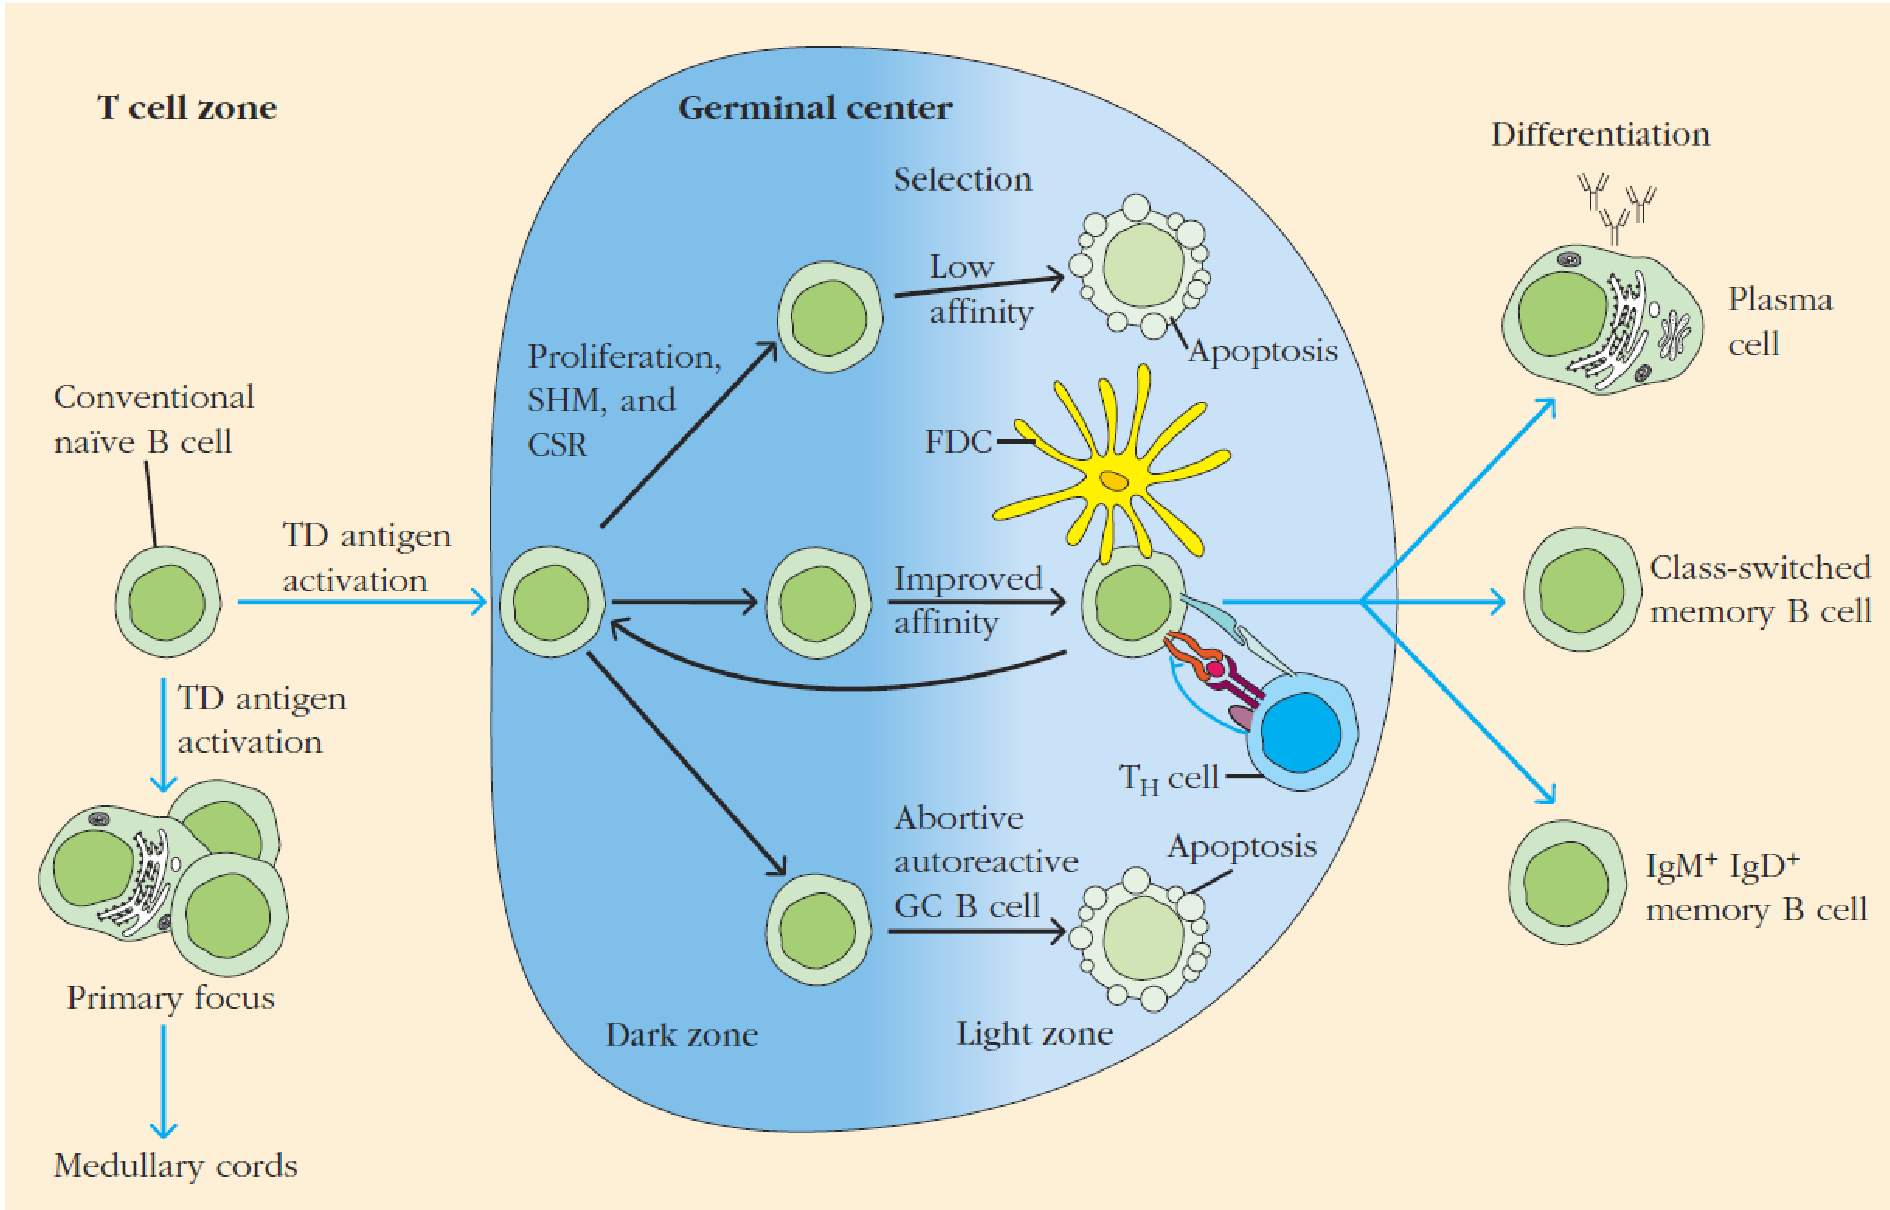
TD 途径激活后的 B 细胞原地开始增殖分化,其中一部分形成早期浆母细胞以及早期抗体分泌细胞,迅速开始为机体免疫提供 IgM 的抗体支援。
此过程中,会在淋巴结里形成 初级聚合灶,这是体液免疫的“第一枪”。
与此同时,另一部分活化的 B 细胞迁移回滤泡内,建立 CGs (生发中心),在这里 B 细胞(们)将会发生 SHM (体细胞高频突变)以优化抗体的结合能力,并通过 CSR (类别转换重组)形成不同的抗体分泌类型,以适配不同的免疫防御需求。
Tip
当然,你可能会好奇什么样的机制会决定活化后的 B 细胞如何决定其分化命运——形成初级聚合灶或者生发中心,答案是……
不知道,目前只能说这是一个 “随机过程”。
体液免疫超级总部:生发中心
生发中心的活化 B 细胞会发生极其高频的体细胞突变,大约是每代每 1000 碱基对发生一个突变(为宇宙射线背景贡献的十万倍),被称作体细胞高频突变 SHM。通过对突变后的 Ig 进行筛选,不断优化出更高亲和力的抗体。同时在 Tfh 的 IL 的作用下,B 细胞发生 CSR,转换得到其他 Ig 类别的分泌抗体。
生发中心里发生了什么?
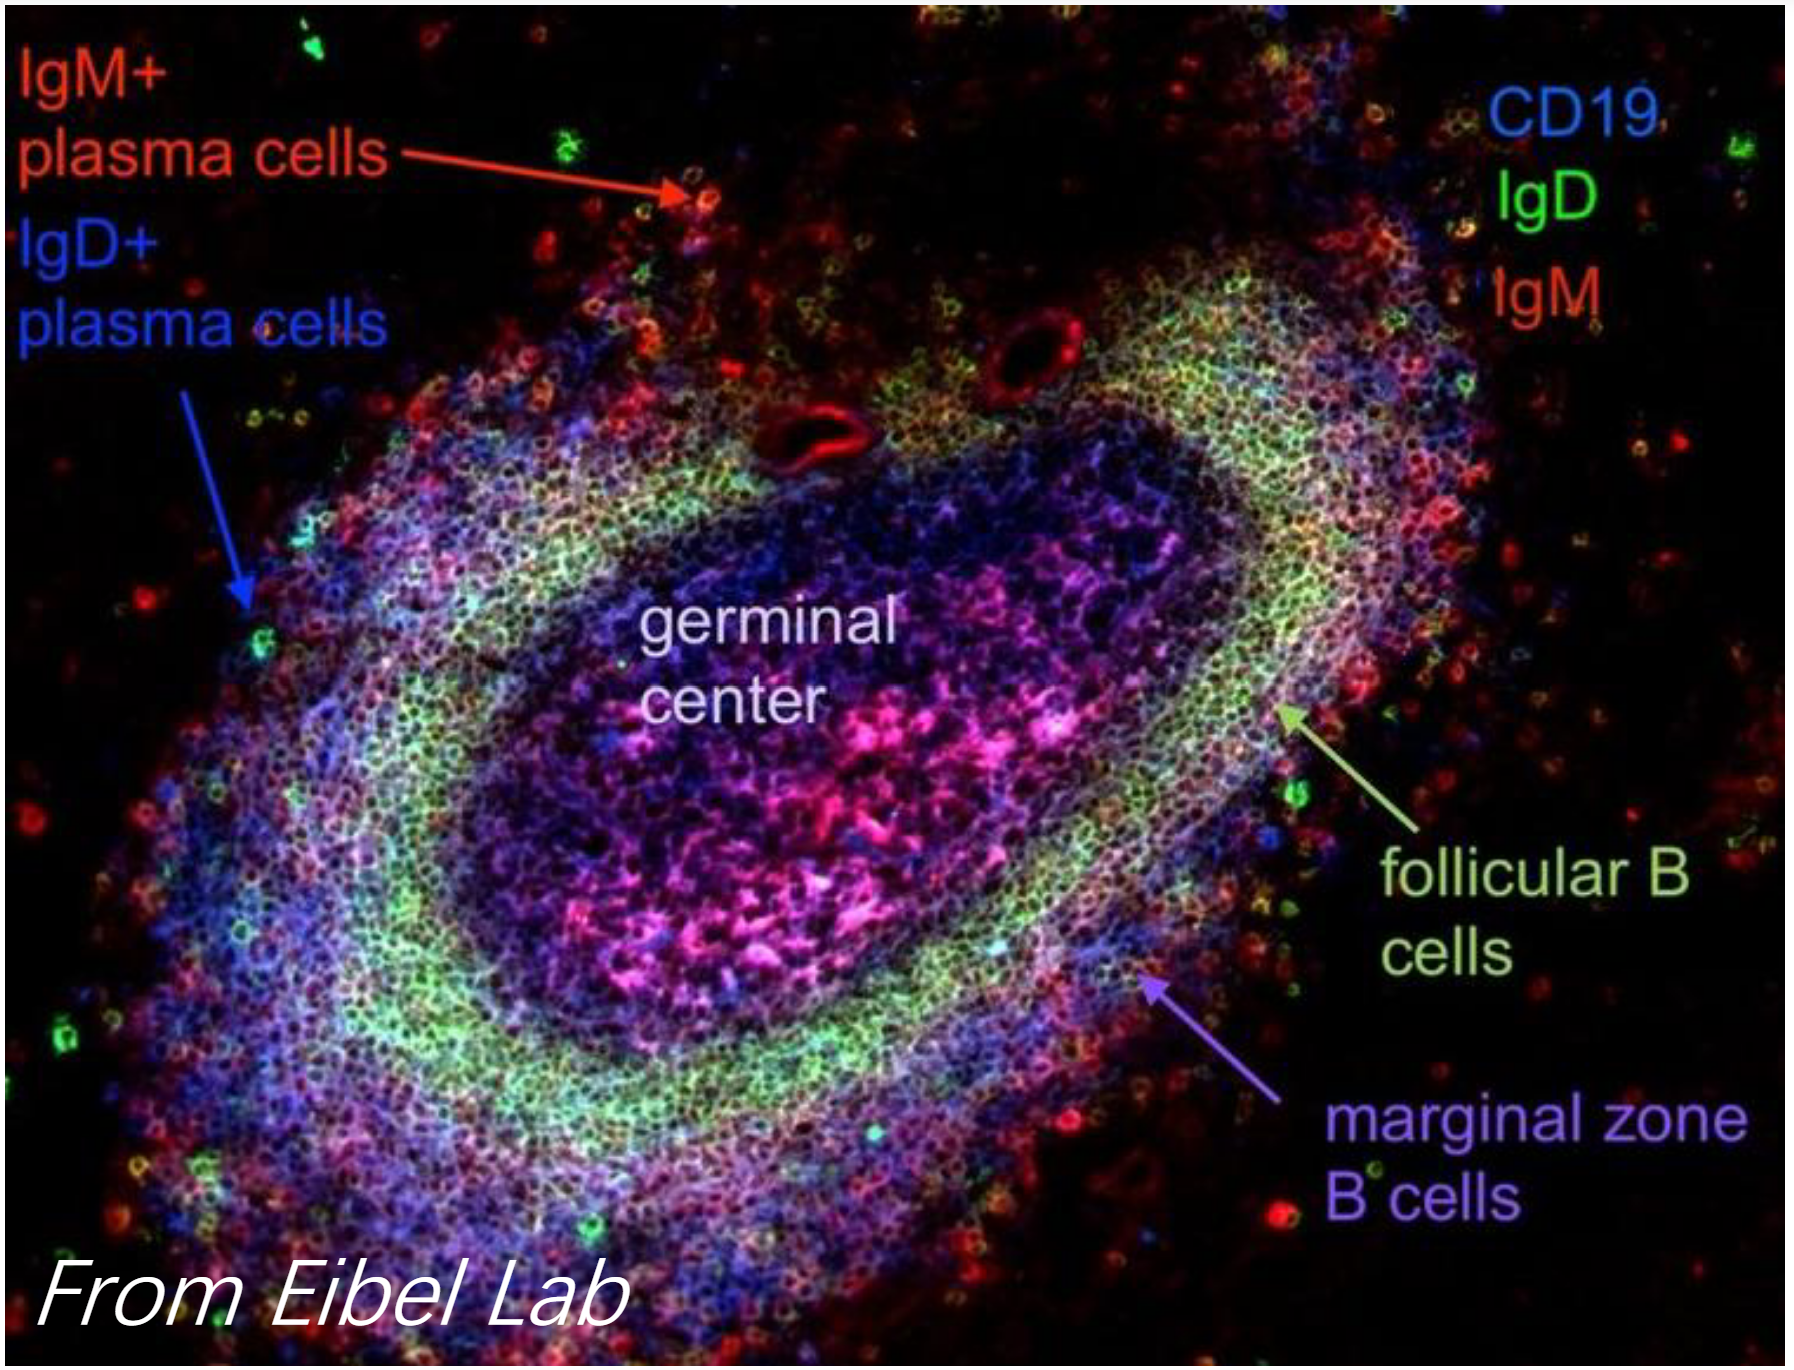
迁移回滤泡的 B 细胞在 FDC 和 Tfh 的帮助下大量增殖,此过程中其膜表面 IgD 水平下调,并将未参与应答的初始 B 细胞挤出生发中心——形成 follicular mantle zone 滤泡套区。
猜猜是谁没有接收到邀请?
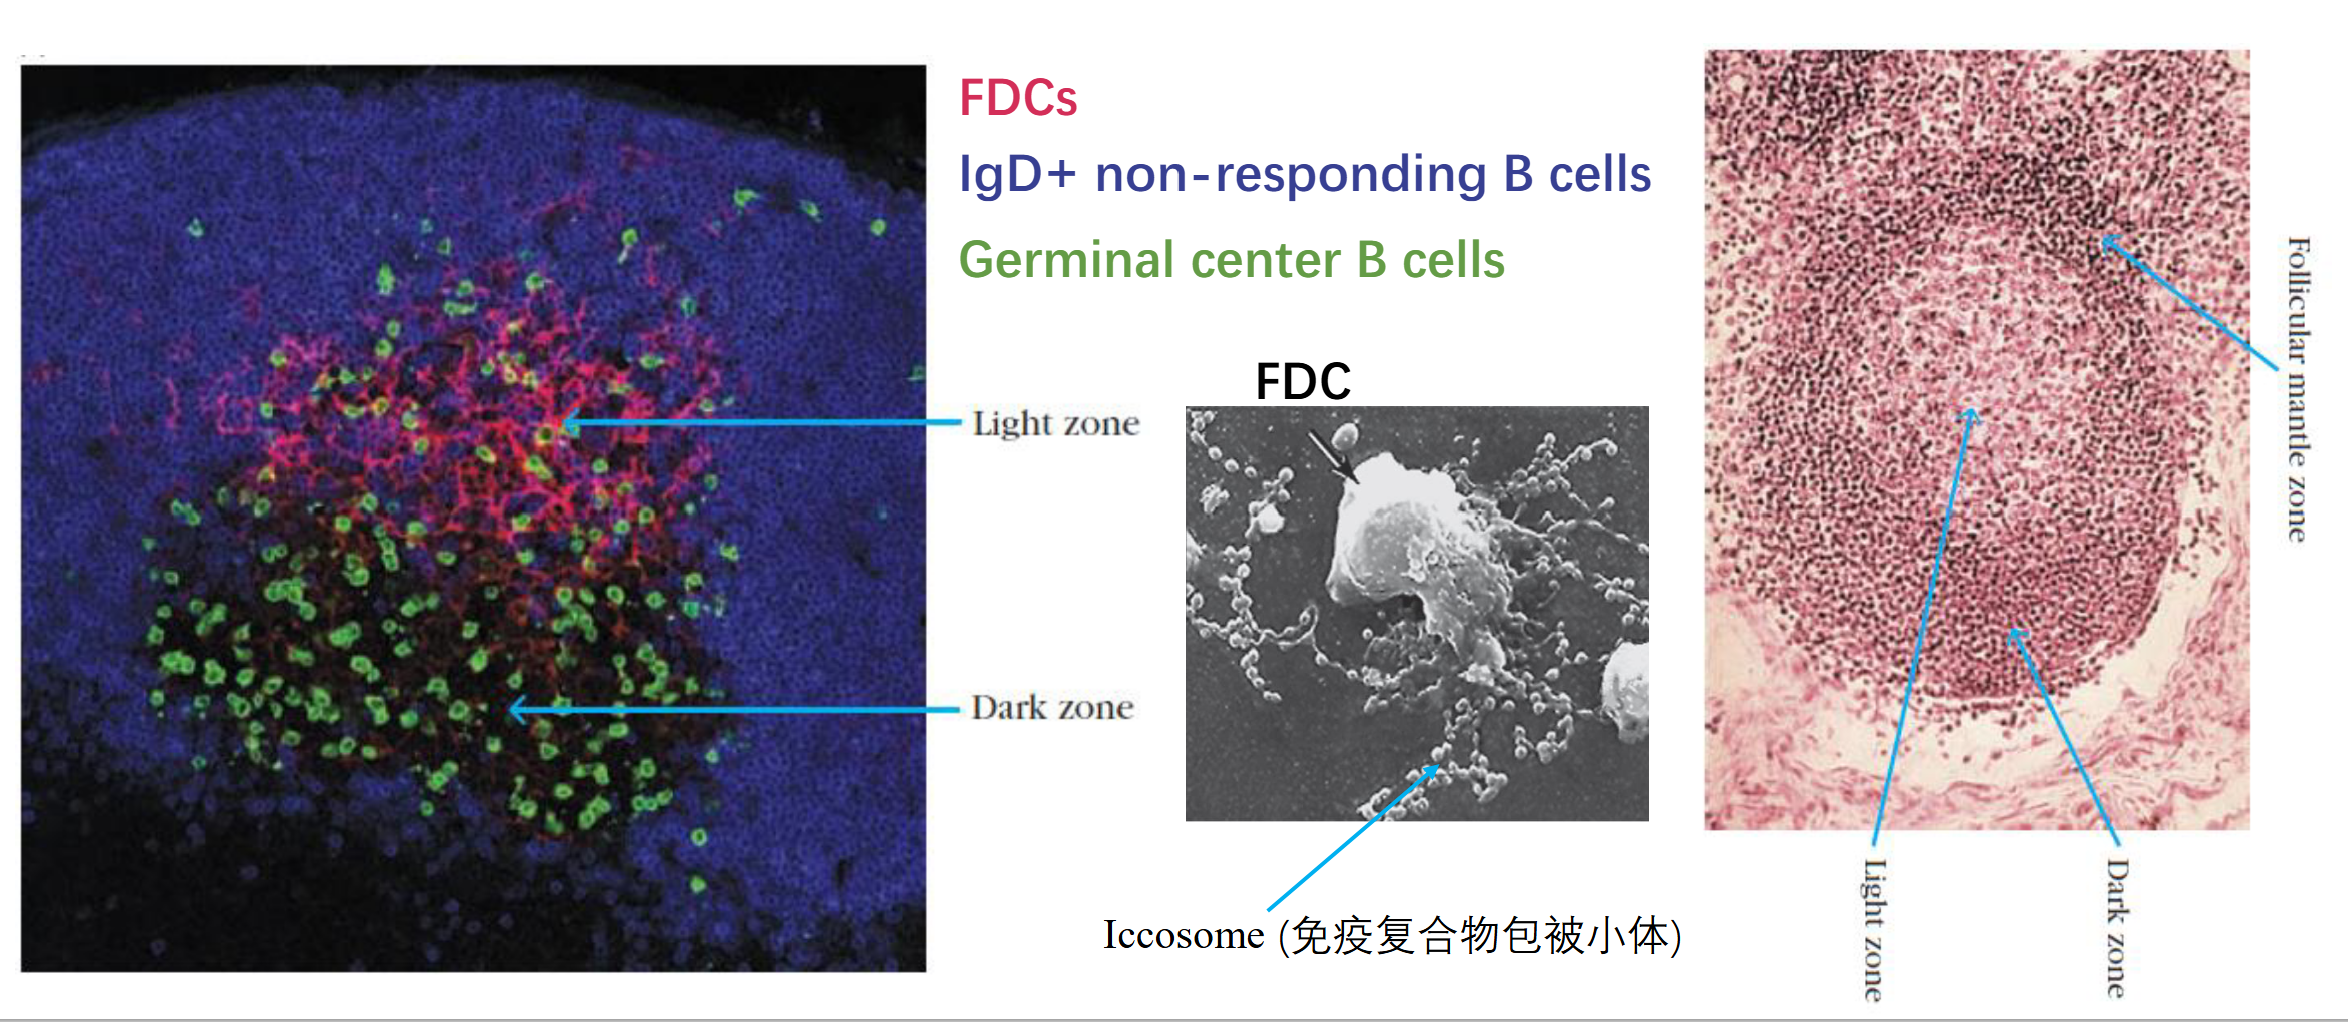
一个生发中心包含明区与暗区两个结构,其中:
- Dark Zone:细胞密度高,主要发生 B cell 的增殖与 SHM
- Light Zone:细胞密度较低,含有较多的 FDC 和 Tfh,在这里 B 细胞会进行亲和力的筛选。
整个“突变-筛选”的循环就这么不断在暗区、明区之间交替发生。
SHM 后获得高亲和力 B 细胞可以获得更多来自于 FDC 呈递的天然抗原,加工呈递并获得来自于 有限的 Tfh 的帮助,使得具有高亲和力的 B 细胞获得更多存活、增殖的可能,从而筛选出更成熟、更高亲和力的 B 细胞。
高频突变与自身免疫反应
SHM 可能会带来具有自身免疫反应的 B 细胞,这显然是违背我们预期的,虽然科学界没有明确的解释生发中心如何避免这种情况发生,但有一种可信的说法是,生发中心中具有自身免疫反应的 B 细胞的 BCR 结合大量自身抗原后内吞,使得膜上 BCR 水平减少,信号降低,处于竞争劣势。
SHM
介导 V(D)J 重排的是 RAG,而介导 SHM 发生的则是 AID,即活化诱导型胞苷脱氨酶,由 AICDA 基因编码。
其将 DNA 中的胞嘧啶脱氨,形成尿嘧啶,造成 C:G -> U:G 的碱基错配。
之后细胞 DNA 修复介入时候可能会造成碱基配对的改变,从而极大程度地加速抗体可变区的突变积累。
AID 的作用不仅限于此,接下来的 CSR 也有它的身影。
SHM 主要发生在 VDJ 可变区位置,而 CSR 则主要发生在 重链恒定区。
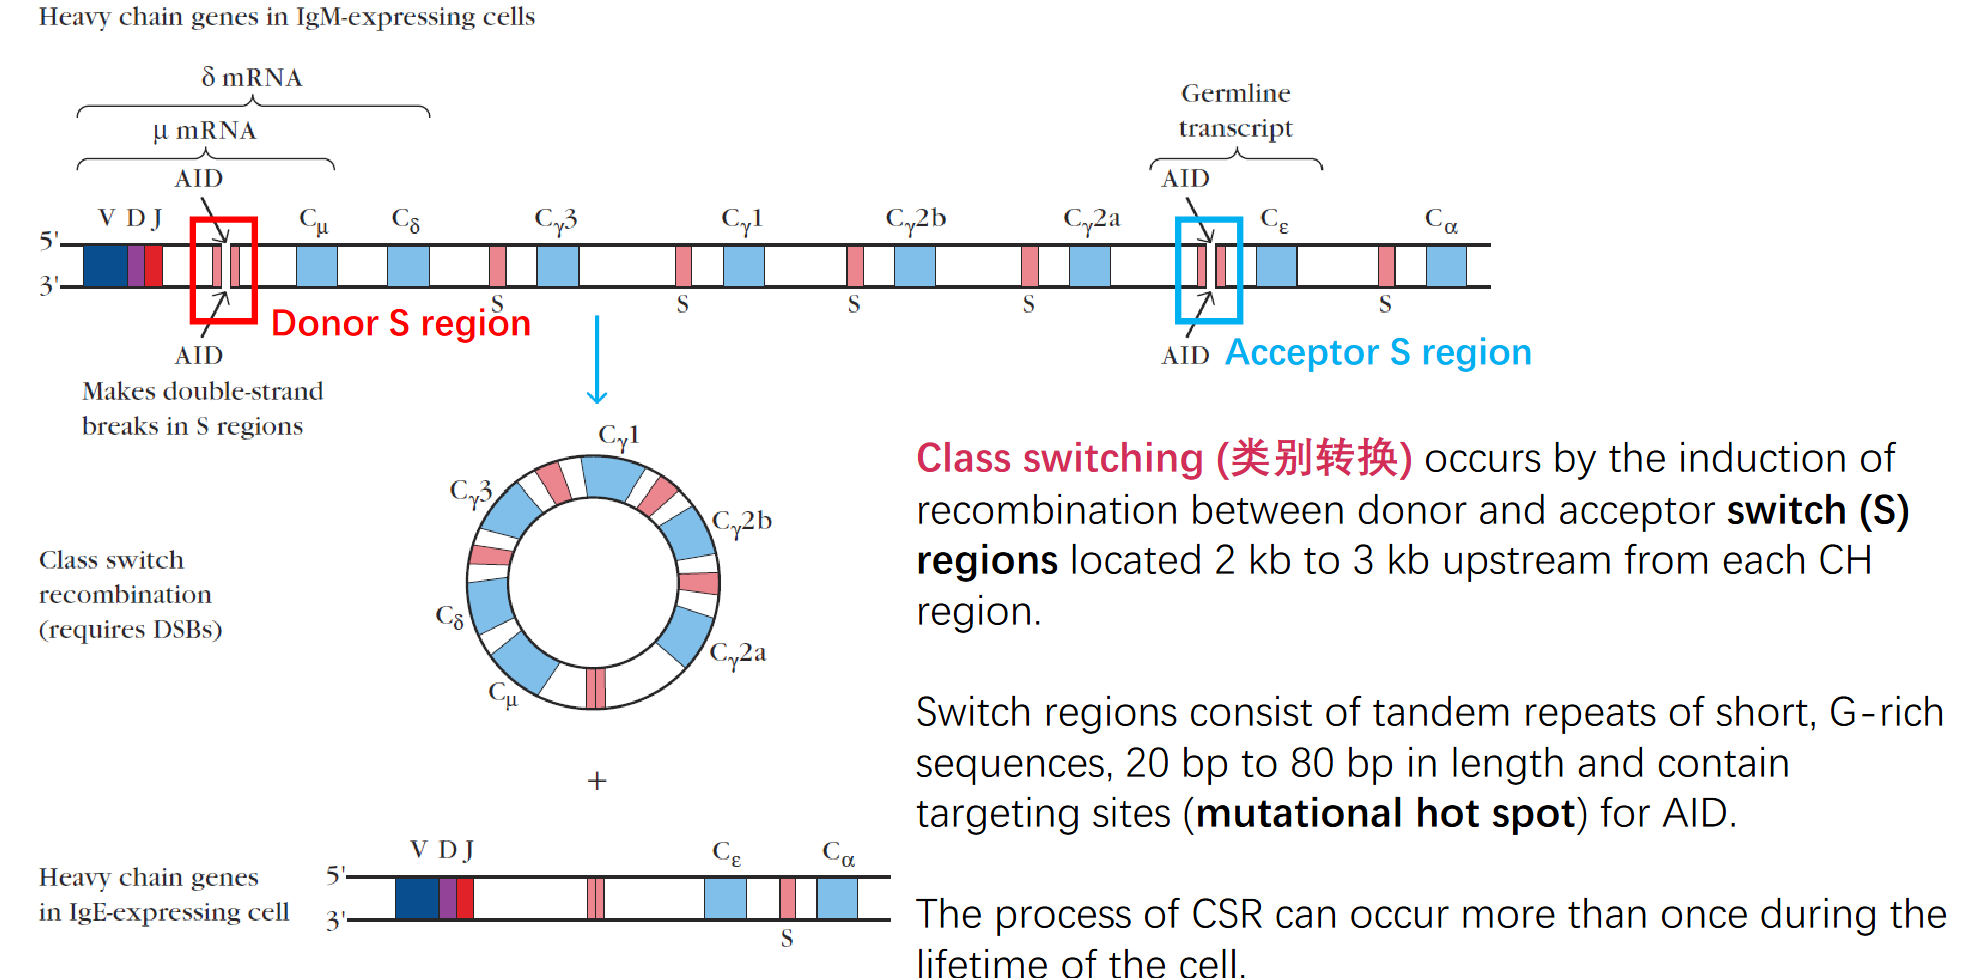
同之前在淋巴细胞发育中所讲的一样,重链恒定区在基因组上有多个基因座,一般情况下,排在最前面的 Cμ 重链恒定区会与 VDJ 结合形成 IgM 表达,但在 CSR 中,AID 会直接在多个 C 区基因座之间的 S 区 (switch region)序列上掺入错配损伤,引发 DNA 双链断裂,从而切除一段 C 区 DNA,将目标重链恒定区直接与 VDJ 相连。
五个抗体?一休尼免疫!
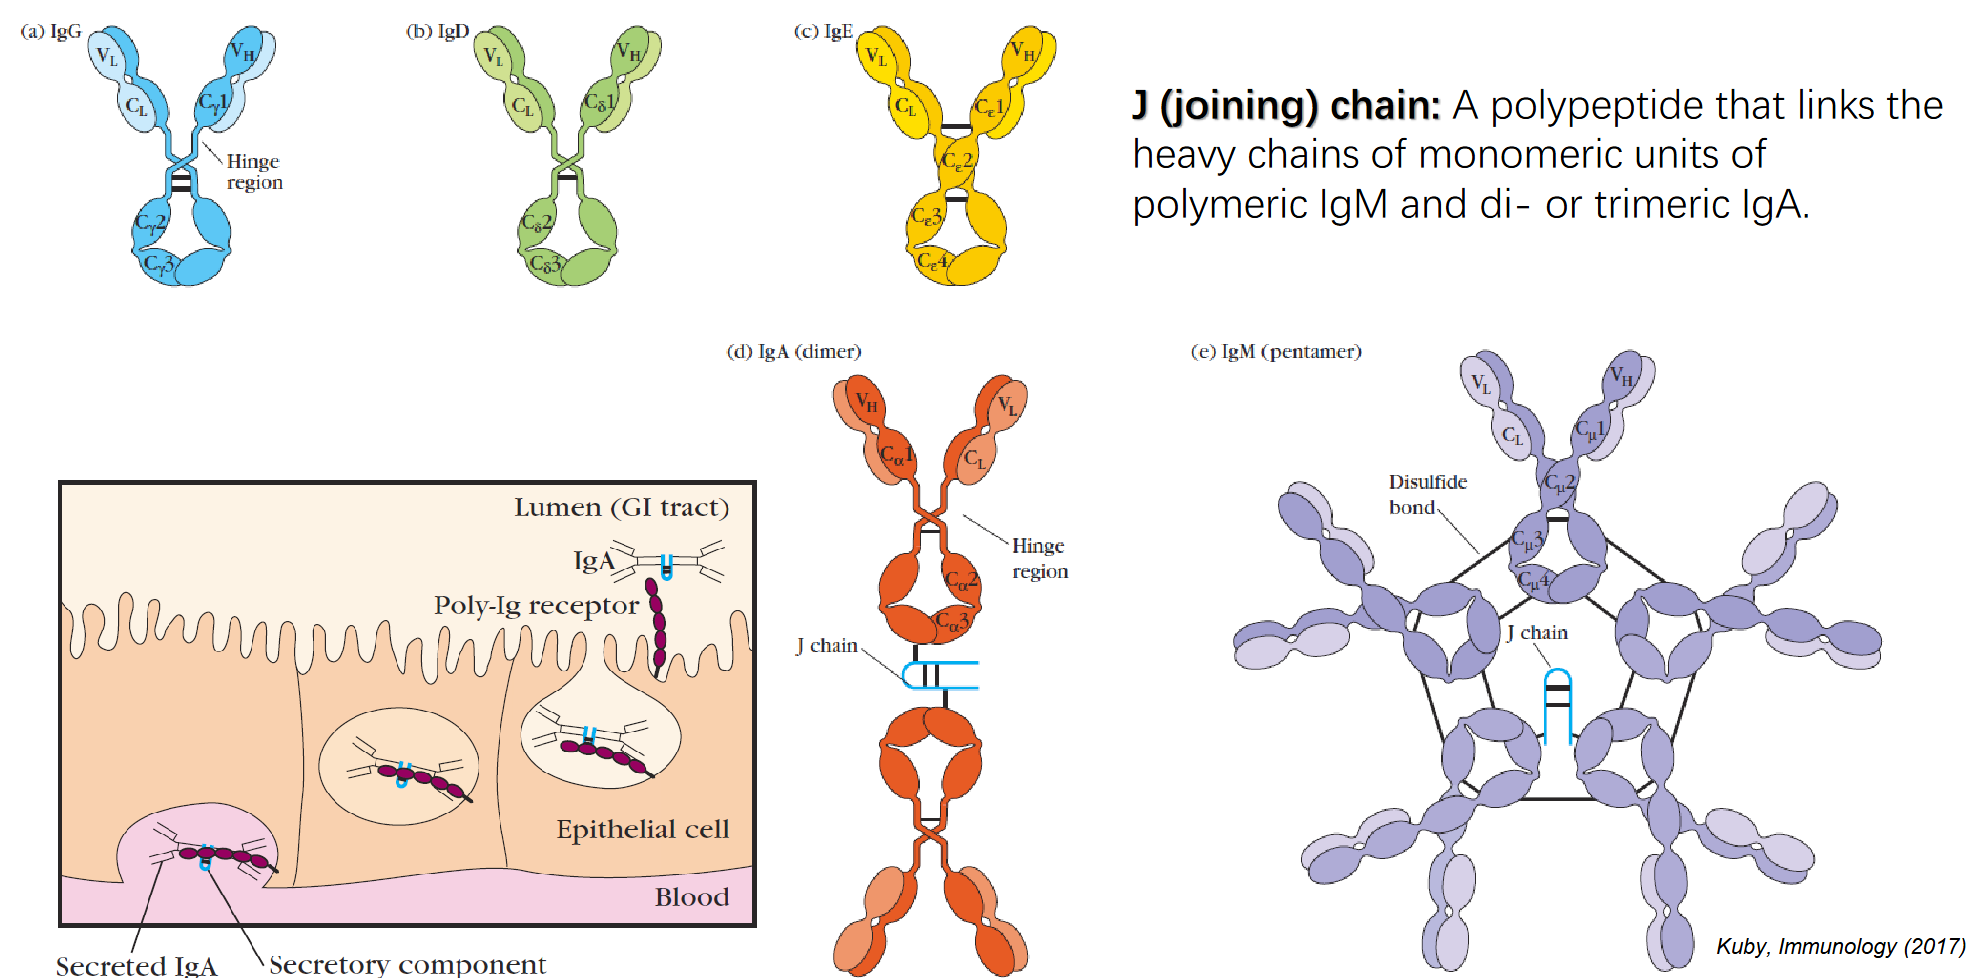
人体内有五种主要的抗体类别,可见下表
其中 IgA 和 IgM 通过 J chain 形成多聚体。IgA 可以通过肠道吸收,进入人体,这是新生儿从母乳中获得免疫保护的重要机制。
谁的命令?B 细胞 CSR 命运
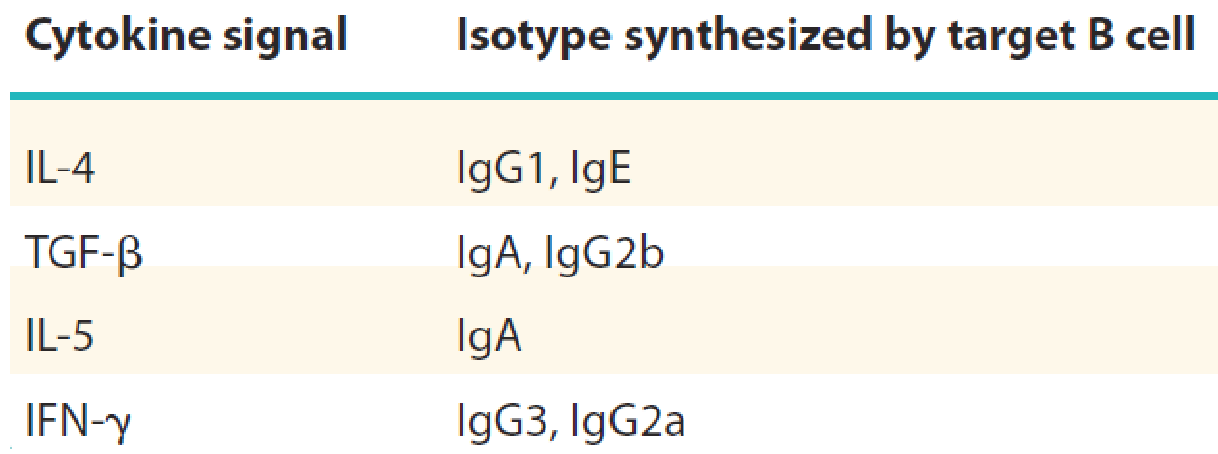
持续的来自于 CD40 的信号是 CSR 开始的一大先决条件,而 B cell TLR 也偶尔参与到 CSR 的过程当中。
不同的细胞因子组合则是 CSR 命运的一大推手(仅供了解)。
大将军与隐士:浆细胞与记忆 B 细胞
浆细胞
同 浆母细胞 不同,浆细胞是 SHM 与 CSR 双重作用下训练出的超级特种兵,部分浆细胞在生发中心战斗爽,大量分泌抗体参与激烈的免疫防御过程。
通过上调 IRF-4 的表达,诱导 BLIMP-1 表达,从而抑制增殖变异的程序,进入浆细胞分化
其中部分浆细胞下调 CXCR5,上调 CXCR4 感受 CXCL12,从而完成从滤泡到骨髓内的迁移,这些浆细胞被称为 长寿命浆细胞,即使急性期结束,这些浆细胞也会持续分泌抗体,使得机体在感染后的一段时间内都能维持足够的抗体水平,形成免疫保护。
记忆 B 细胞
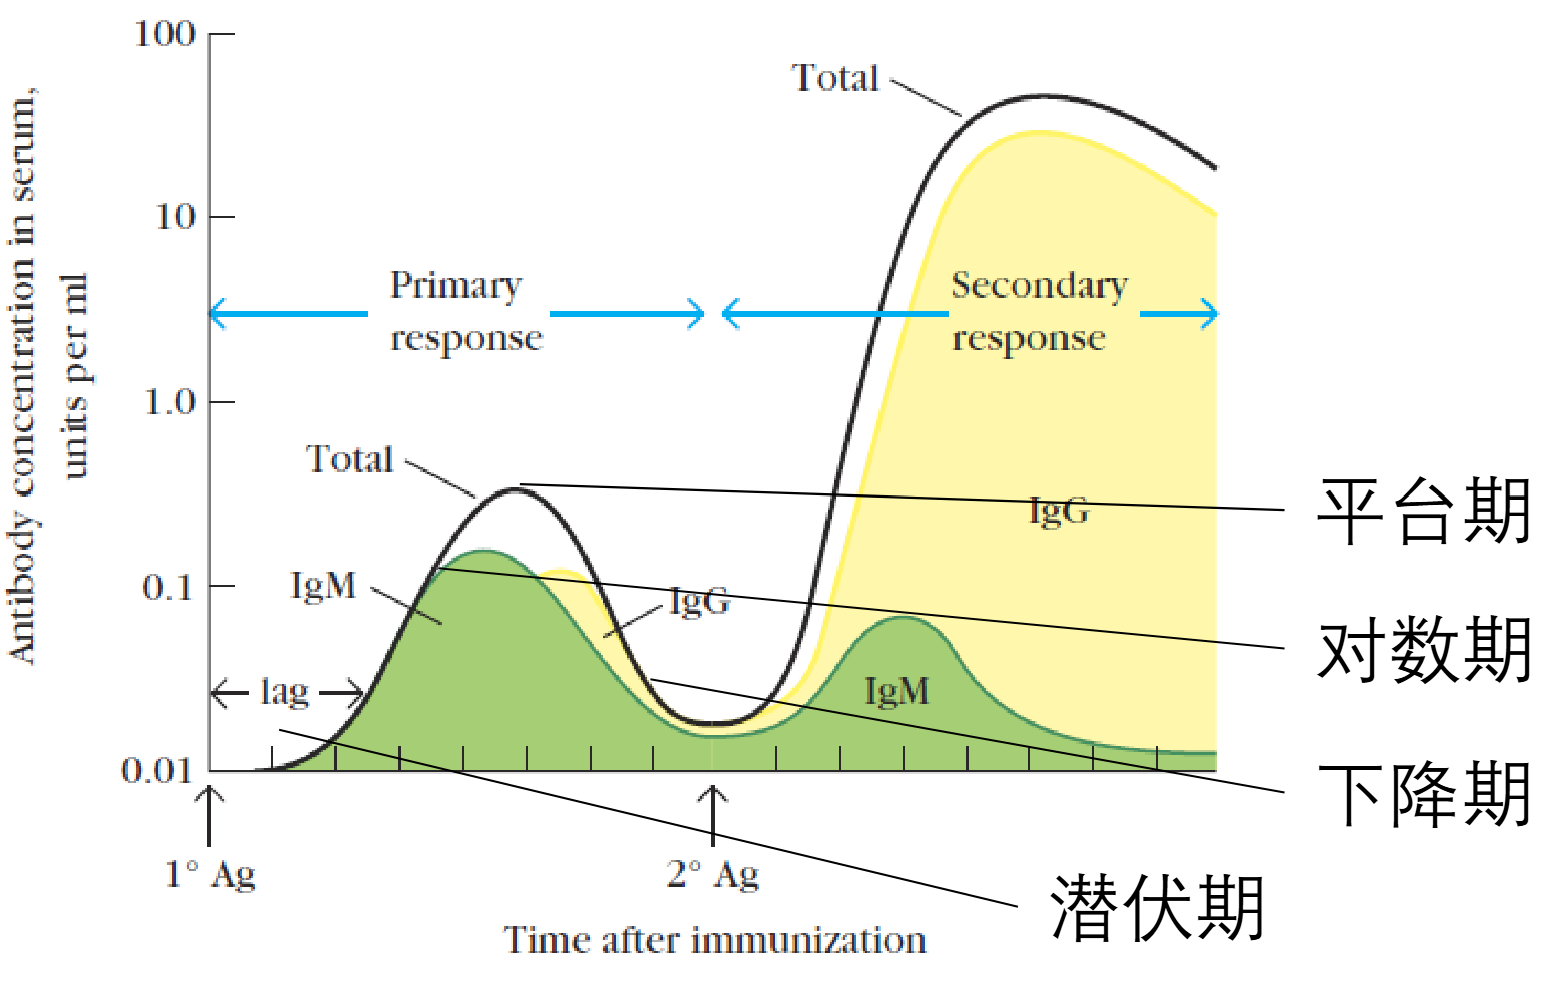
部分没有分化为浆细胞的 B 细胞成为 记忆 B 细胞,它们将参与到二次免疫应答中,为机体提供更强大,更快速,更精准的体液免疫保护。
对于二次免疫应答,除开不需要再次费劲巴拉找一个 Native B cell 激活以外,剩下的步骤跟首次免疫都差别不大,其中仍然会进行筛选、分化。
TI 途径 —— 这个(Th),不需要了!
使用缺乏胸腺的裸鼠实验发现,其 B 细胞可以对许多 糖类抗原 产生免疫应答,这提示存在一种不依赖 Th 的 B 细胞活化途径,即 TI 途径。
其中 TI-1 和 TI-2 两种抗原通过不同的机制绕过 Th 给予 B 细胞强烈的活化信号:
To be water~ B 细胞负向调控
为了控制体液免疫反应强度在合适的范围之内,机体通过 CD22、FcγRIIb,以及分泌 IL-10 的调节性 B 细胞实现这个目标。
- 相对于 Igα/β 胞内的 ITAM —— 免疫受体酪氨酸活化基序,CD22 胞内段有 ITIM —— 免疫受体酪氨酸抑制基序,其可以减弱 BCR 信号的传递。
- FcγRIIb 是一种能够结合 IgG 的 Fc 段的抑制性受体,也带有 ITIM。
- 一部分具有调节功能的 B 细胞能产生 IL-10,抑制过强的炎症反应。这类细胞常被称为调节性 B 细胞,Breg。